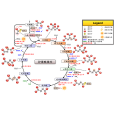
三羧酸循環(tricarboxylic acid cycle,TCA cycle)又稱檸檬酸循環(citric acid cycle)、克雷布斯循環(Krebs cycle),是需氧生物體內普遍存在的一種代謝途徑,是細胞代謝的核心途徑。它在營養物質氧化,進而產生能量的過程中發揮著重要作用。三羧酸循環是三大營養素(糖類、脂類、胺基酸)的最終代謝通路,也是各種有機物相互轉化的樞紐。該循環的部分產物在免疫反應調節等生理過程中也發揮著重要作用,也可用於合成包括胺基酸、卟啉、嘧啶核苷酸在內的很多重要物質。
原核生物中三羧酸循環發生的場所是細胞質,真核生物則是線粒體基質。在這個過程中,檸檬酸經過一系列酶促的氧化脫氫和脫羧反應生成草醯乙酸,而草醯乙酸又可與另1分子的乙醯輔酶A(乙醯-CoA)結合,生成檸檬酸,從而產生循環。整個過程總共消耗了3分子H2O,生成1分子GTP(可轉換為1分子的ATP)、4對H和2分子CO2,其中H可通過後續反應產生ATP,為細胞供能。
基本介紹
- 中文名:三羧酸循環
- 外文名:The tricarboxylic acid cycle
- 別名:檸檬酸循環、克雷布斯循環
- 領域:生物化學
- 簡稱:TCA循環
- 屬性:是糖類、脂類、胺基酸代謝聯繫的樞紐。
定義,發現過程,循環過程,循環總結,調節功能,過程調控,生理意義,
定義
三羧酸循環是一個由一系列酶促反應構成的循環反應系統,是需氧生物體內普遍存在的一種代謝途徑。它起始於草醯乙酸與乙醯輔酶A縮合成檸檬酸的反應。檸檬酸經過異構化形成異檸檬酸,然後氧化脫氫形成草醯琥珀酸。草醯琥珀酸通過脫羧形成α-酮戊二酸,再氧化脫羧形成四碳化合物,後者經過3次轉化,最後形成循環起始的四碳化合物草醯乙酸,完成一次循環。該循環過程中形成一個高能化合物(GTP),並使FAD和NAD+分別還原成FADH2和NADH。
發現過程
三羧酸循環由漢斯·克雷布斯(Hans Krebs)於1937年首次提出,並以檸檬酸循環命名,原本是用於描述鴿子胸肌中碳水化合物氧化的中間階段。三羧酸循環是生物化學和細胞生物學的基礎理論之一,克雷布斯也因此獲得了1953年諾貝爾生理學或醫學獎。
20世紀初,細胞呼吸仍然是生物學領域尚未解決的主要問題之一。科學家們知道細胞呼吸涉及氧氣消耗,並懷疑這一過程與糖類等營養物質的分解過程存在某種聯繫,但這個過程的具體機制還是完全未知。為了理解糖類的氧化分解過程,匈牙利科學家阿爾伯特·森特-喬吉(Albert Szent-Gyorgyi)選擇了呼吸速率高且易於獲取的鴿胸肌進行實驗,然後於1935年確定了從琥珀酸到富馬酸再到蘋果酸,最終到草醯乙酸(OAA)的反應序列,並展示了鴿胸肌懸液中這些物質的快速氧化過程。從這項工作中,森特-喬吉推測二羧酸催化促進了氧氣的吸收。
次年,斯塔爾和鮑曼發現,少量的二羧酸就足以引起氧氣消耗量的增加,而且這種增加超過了實驗中底物所需的氧化量。值得注意的是,他們還發現添加的二羧酸並沒有被耗盡,仍然能在培養基中檢測到,這表明這些化合物應該是以催化劑的身份發揮作用。
1937年,漢斯·克雷布斯發現,在丙酮酸的存在下,動物組織可以合成琥珀酸,這使他推測琥珀酸可能源於丙酮酸下游的檸檬酸氧化反應。同年,馬蒂烏斯和克諾普的一項關鍵發現表明,α-酮戊二酸(αKG)是檸檬酸氧化的產物,並推導出了從檸檬酸到琥珀酸的一系列反應步驟。
這些關鍵性實驗為漢斯·克雷布斯和他的同事威廉·詹森(William Johnson)於1937年在《酶學》(Enzymologia)上發表的研究奠定了基礎,他們在該研究中發現,碎雞胸肌很容易將檸檬酸氧化,而且由添加檸檬酸引起的氧氣消耗量甚至超出了完全氧化檸檬酸所需的量,這表明檸檬酸本身會刺激分子氧的消耗。同時,他們發現,在這個過程中檸檬酸並沒有消失,這表明它一直在被不斷再生。此外,在OAA的存在下,肌肉可以在無氧條件下合成大量檸檬酸,而且當OAA添加到肌肉中時,它會與來自未知前體的兩個碳原子結合形成檸檬酸。而加入丙二酸(malonate,一種琥珀酸氧化的抑制劑)之後再添加OAA,則琥珀酸會積累,這意味著這一系列反應具有循環性。在隨後的研究中,克雷布斯確定了與OAA結合形成檸檬酸的兩個碳原子來自丙酮酸,並且當丙酮酸被添加到肌肉中時,肌肉的氧氣消耗量會增加。利普曼等人後來的研究闡明,用於檸檬酸合成的兩碳分子實際上是乙醯輔酶A。
循環過程
總反應式:
乙醯-CoA+3NAD+FAD+GDP+Pi+2H2O→2CO2+3NADH+FADH2+GTP+3H+CoA-SH
三羧酸循環可概括為如下8步反應:
1、草醯乙酸與乙醯輔酶 A縮合形成檸檬酸
在檸檬酸合酶的催化下,草醯乙酸與乙醯-CoA發生醛醇縮合,生成檸檬酸。
檸檬酸合酶的催化過程嚴格按以下順序進行:先與草醯乙酸結合,誘發構象變化,再與乙醯輔酶A結合。首先,檸檬酸合酶的組氨酸殘基作為鹼基與乙醯-CoA作用,使乙醯-CoA的甲基上失去一個H,生成的碳陰離子對草醯乙酸的羰基碳進行親核攻擊,生成檸檬醯-CoA中間體,然後高能硫酯鍵水解放出遊離的檸檬酸,使反應不可逆地向右進行。該反應是很強的放能反應。
2、檸檬酸異構化形成異檸檬酸
檸檬酸的叔醇基不易氧化,而轉變成異檸檬酸可以使叔醇變成仲醇,就易於氧化。此反應由順烏頭酸酶催化,為一可逆反應。
反應的中間產物順式烏頭酸不與酶分離,其中的H2O可往復地以兩種不同的方式與順式烏頭酸的雙鍵結合,分別形成檸檬酸和異檸檬酸。在pH7.4和 25℃的環境中,當反應達到平衡時,只有10%的異檸檬酸形成。在細胞內,異檸檬酸不斷被消耗,因此推動此反應不斷地由左向右進行。
3、異檸檬酸氧化脫羧形成α-酮戊二酸(αKG)
在異檸檬酸脫氫酶作用下,異檸檬酸的仲醇氧化成羰基,生成草醯琥珀酸(oxalosuccinicacid)的中間產物,後者快速脫羧生成α-酮戊二酸、NADH和CO2,此反應為β-氧化脫羧反應,反應不可逆,是三羧酸循環中的限速步驟,也是第一次氧化脫羧反應,產生第一個CO2和NADH。
異檸檬酸脫氫酶需要鎂離子作為激活劑,在真核細胞中存在兩種同工酶形式,一種以NAD為輔酶,只存在於線粒體中;一種以NADP為輔酶,既存在於線粒體中也存在於細胞溶膠中。ADP是異檸檬酸脫氫酶的激活劑,而ATP、NADH是此酶的抑制劑。
4、α-酮戊二酸氧化脫羧形成琥珀醯輔酶A(琥珀醯-CoA)
在α-酮戊二酸脫氫酶複合體作用下,α-酮戊二酸氧化脫羧生成琥珀醯-CoA、NADH·H和CO2,反應過程完全類似於丙酮酸脫氫酶複合體催化的氧化脫羧,屬於α-氧化脫羧,氧化產生的一部分能量儲存於琥珀醯-CoA的高能硫酯鍵中。
α-酮戊二酸脫氫酶複合體與丙酮酸脫氫酶複合體極其相似,由三種酶,即α-酮戊二酸脫羧酶(E1)、二氫硫辛醯轉琥珀醯酶(E2)和二氫硫辛醯脫氫酶(E3)和五個輔酶(TPP、硫辛酸、輔酶A、NAD、FAD)組成。此反應也是不可逆的。α-酮戊二酸脫氫酶複合體受ATP、GTP、NADH和琥珀醯-CoA抑制,但其不受磷酸化/去磷酸化的調控。
5、琥珀醯-CoA轉化為琥珀酸並伴隨底物水平磷酸化反應的發生
在琥珀醯輔酶A合成酶(或稱琥珀酸硫激酶)的作用下,琥珀醯-CoA的硫酯鍵水解,生成琥珀酸和輔酶A,釋放的自由能用於合成GTP或ATP。
在細菌和高等生物中可直接生成ATP,在哺乳動物中,先生成GTP,再生成ATP。
6、琥珀酸脫氫形成延胡索酸
琥珀酸脫氫酶(succinatedehydrogenase)催化琥珀酸氧化成為延胡索酸。該酶結合線上粒體內膜上,在原核細胞中則是與細胞質膜結合(其他三羧酸循環的酶都線上粒體基質中)。琥珀酸脫氫酶屬於電子傳遞呼吸鏈的一個組分,被稱為複合物Ⅱ,含有鐵硫中心和共價結合的FAD。來自琥珀酸的電子通過FAD和鐵硫中心,進入電子傳遞鏈到O2。丙二酸是琥珀酸的類似物,是琥珀酸脫氫酶強有力的競爭性抑制物,所以可以阻斷三羧酸循環。
7、延胡索酸水合形成L-蘋果酸
延胡索酸酶的催化下,延胡索酸水合形成L-蘋果酸。該反應為可逆反應,延胡索酸酶僅對延胡索酸的反式雙鍵起作用,而對順丁烯二酸(馬來酸)則無催化作用,因而是高度立體專一性的。
8、蘋果酸氧化形成草醯乙酸
在蘋果酸脫氫酶(malicdehydrogenase)作用下,蘋果酸仲醇基脫氫氧化成羰基,生成草醯乙酸(oxalocetate),NAD是脫氫酶的輔酶,接受氫成為NADH·H。
該反應在熱力學上是不利的,但由於檸檬醯輔酶A的硫酯鍵水解時高度放能,使草醯乙酸在低的生理濃度下(小於10 mol/L)也可被轉變為檸檬酸。
循環總結
在三羧酸循環中,最初草醯乙酸因參加反應而消耗,但經過循環又重新生成。所以每循環一次,淨結果為1個乙醯基通過兩次脫羧而被消耗。循環中有機酸脫羧產生的二氧化碳,是機體中二氧化碳的主要來源。
循環中有4次氧化反應,使3個NAD還原成NADH,1個FAD還原成FADH2。每次循環也要消耗2個H2O分子,產生1個GTP或ATP高能鍵。雖然無氧分子直接參加反應,但三羧酸循環只在有氧條件下進行,因為三羧酸循環所產生的3個NADH和1個FADH2分子中的電子只有通過呼吸鏈傳遞給氧分子後才可被重新氧化成NAD和FAD,這樣檸檬酸循環中的氧化反應才可重複發生。
理論上,只要持續供應乙醯-CoA,OAA就可以無限制地再生,TCA循環也就能一直持續。然而,TCA循環的中間體也可以從循環中抽取出來,用於其他代謝途徑或為大分子生物合成提供前體,這一過程稱為“卡塔普洛羅西”。
乙醯輔酶A不僅來自糖的分解,也可由脂肪酸和胺基酸的分解代謝中產生。並且,凡是能轉變成三羧酸循環中任何一種中間代謝物的物質都能通過三羧酸循環而被氧化。所以三羧酸循環實際是糖、脂、蛋白質等有機物在生物體內末端氧化的共同途徑。三羧酸循環既是分解代謝途徑,但又為一些物質的生物合成提供了前體分子。如草醯乙酸是合成天冬氨酸的前體,α-酮戊二酸是合成谷氨酸的前體。一些胺基酸還可通過此途徑轉化成糖。
調節功能
糖有氧氧化分為兩個階段,第一階段糖酵解途徑的調節在糖酵解部分已探討過,下面主要討論第二階段丙酮酸氧化脫羧生成乙醯-CoA並進入三羧酸循環的一系列反應的調節。丙酮酸脫氫酶複合體、檸檬酸合成酶、異檸檬酸脫氫酶和α-酮戊二酸脫氫酶複合體是這一過程的限速酶。
丙酮酸脫氫酶複合體受別構調控也受化學修飾調控,該酶複合體受它的催化產物ATP、乙醯-CoA和NADH有力的抑制,長鏈脂肪酸也可通過影響乙醯-CoA的積累從而增強該抑制效應。當進入三羧酸循環的乙醯-CoA減少,而AMP、CoA和NAD+堆積,酶複合體就被別構激活,除上述別位調節,在脊椎動物還有第二層次的調節,即酶蛋白的化學修飾,PDH含有兩個亞基,其中一個亞基上特定的一個絲氨酸殘基經磷酸化後,酶活性就受抑制,脫磷酸化活性就恢復,磷酸化-脫磷酸化作用是由特異的磷酸激酶和磷酸蛋白磷酸酶分別催化的,它們實際上也是丙酮酸酶複合體的組成,即前已述及的調節蛋白,激酶受ATP別構激活,當ATP高時,PDH就磷酸化而被激活,當ATP濃度下降,激酶活性也降低,而磷酸酶除去PDH上磷酸,PDH又被激活了。
對三羧酸循環中檸檬酸合成酶、異檸檬酸脫氫酶和α-酮戊二酸脫氫酶的調節,主要通過產物的反饋抑制來實現的,而三羧酸循環是機體產能的主要方式。因此ATP/ADP與NADH/NAD+兩者的比值是其主要調節物。ATP/ADP比值升高,抑制檸檬酸合成酶和異檸檬酶脫氫酶活性,反之ATP/ADP比值下降可激活上述兩個酶。NADH/NAD+比值升高抑制檸檬酸合成酶和α-酮戊二酸脫氫酶活性,除上述ATP/ADP與NADH/NAD+之外其它一些代謝產物對酶的活性也有影響,如檸檬酸抑制檸檬酸合成酶活性,而琥珀醯-CoA抑制α-酮戊二酸脫氫酶活性。總之,組織中代謝產物決定循環反應的速度,以便調節機體ATP和NADH濃度,保證機體能量供給。
過程調控
三羧酸循環是為細胞生命活動提供能量的過程,受到嚴格調控。總體而言,底物的可獲得性、積累產物的抑制作用(包括上游酶受到的下游產物的變構反饋抑制)決定著循環的運行速率。
1. 丙酮酸脫氫酶複合體的調節
丙酮酸脫氫酶複合體負責催化丙酮酸轉變為乙醯輔酶A,它決定了進入循環的底物乙醯輔酶A的可獲得性。該酶複合體的活性可以被NADH、乙醯輔酶A、ATP 和脂肪酸變構抑制,以及被NAD、AMP、輔酶A等變構激活。
在高等生物體內,該酶複合體的活性還可以通過E1亞基的磷酸化(抑制作用)和去磷酸化(激活作用)而發生共價修飾調節。高濃度的ATP可使與丙酮酸脫氫酶複合體結合的丙酮酸脫氫酶激酶活化,促使E1亞基的磷酸化,導致該酶複合體的活性受到抑制。胰島素有激活丙酮酸脫氫酶磷酸酶的作用,使酶複合體從被抑制狀態轉變為被激活的狀態。
此外,Ca可以通過抑制丙酮酸脫氫酶激酶和激活丙酮酸脫氫酶磷酸酶而增強丙酮酸脫氫酶複合體的活性。
2. 檸檬酸合酶、異檸檬酸脫氫酶和α-酮戊二酸脫氫酶的調控
一方面,這些酶的活性受到底物的可獲得性調節:高濃度底物使酶充分發揮活性。比如當NAD的濃度低時,根據質量作用定律,異檸檬酸脫氫酶和α-酮戊二酸脫氫酶催化的反應都不能以最高速度進行。這會導致草醯乙酸的濃度過低,從而使三羧酸循環第一步反應速率減慢。
另一方面,這些酶的活性受到產物積累的調節:當產物濃度高時活性被抑制。比如當琥珀醯輔酶A積累時,α-酮戊二酸脫氫酶的活性就會被抑制,同時檸檬酸合酶的活性也會被抑制。類似地,檸檬酸的積累也會抑制檸檬酸合酶的活性。ATP作為最終產物也能抑制檸檬酸合酶及異檸檬酸脫氫酶的活性。ATP對檸檬酸合酶的抑制可被其別構激活劑ADP解除。
總之,在三羧酸循環中的所有中間物的濃度都會依機體對能量的需要情況而調整,以保證這個循環的運轉恰好能提供最適量的ATP。
生理意義
1. 為細胞提供能量
一個葡萄糖分子經過糖酵解、三羧酸循環和氧化磷酸化徹底氧化所釋放的全部能量大約可產生32個ATP分子。
在糖酵解階段產生2分子NADH;底物水平磷酸化產生4分子ATP,在激活六碳糖時消耗2分子ATP,所以淨產生2個ATP分子。糖酵解生成的2分子丙酮酸在氧化脫羧時產生2個NADH。生成的2分子乙醯輔酶A經過檸檬酸循環後產生6個NADH和2個FADH2,同時通過底物水平磷酸化還產生2個GTP或ATP分子。[a]
每分子NADH的電子經呼吸鏈傳遞並最終與氧結合生成水後,所釋放的能量可以產生大約2.5個ATP分子(過去認為是產生3個ATP分子)。而一個FADH2經過類似的電子傳遞後所釋放的能量可產生大約1.5個ATP分子(過去認為是產生2個ATP分子)。另外,細胞溶膠中所產生的NADH的電子可以通過兩種不同的穿梭途徑進入呼吸鏈,釋放的能量可以產生2.5或1.5個ATP分子。以此計算,一個葡萄糖分子完全氧化可產生30~32個ATP分子(根據舊的算法是36~38個)。
2. 循環過程中各個物質的功能
線粒體檸檬酸可以進入細胞質,並由ACL代謝釋放出乙醯-CoA,這是進行全新脂質合成和蛋白質乙醯化的必要條件。代謝物αKG可以轉化為谷氨酸,進而從循環中轉移出來,用於胺基酸和核苷酸的合成。
蘇氨酸-CoA可以從循環中抽取出來,作為血紅素等卟啉的前體。
