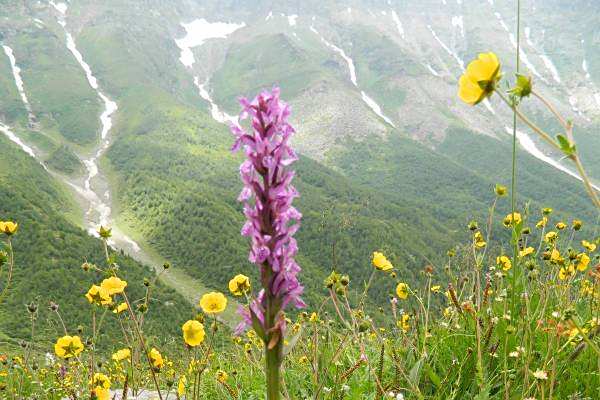
掌裂蘭(學名:Dactylorhiza hatagirea (D. Don) Soó)是蘭科掌裂蘭屬植物。多年生草本植物,高度約為40-60厘米,具有掌狀塊莖,5-7片披針形或長圓形葉子,以及直立、中空、鈍形的莖。花朵為長距、圓柱形,末端為穗狀花序,帶有綠色的苞片。花序由緊湊的總狀花序組成,有25-50朵花。種子非常微小,缺乏儲存養分。花期6-8月。
該物種的原產地從蒙古到喜馬拉雅山脈。主要生長在溫帶生物群落中。生於海拔600-4100米的山坡、溝邊灌叢下或草地中。
該種塊莖入藥。可以代替手參藥用。該植物在阿育吠陀、悉達、尤那尼、阿姆奇和其他替代醫學體系中被廣泛使用。它通常從野外採集,既用於當地作為食物和藥物,也用於貿易——每年都有大量的根被收穫並在國際上交易。
在大多數地點,該物種的密度很低。該物種還受到棲息地喪失、牲畜放牧、森林砍伐和氣候變化的威脅。自20世紀90年代末該物種貿易增加以來,野生種群數量顯著減少,至少懷疑種群數量下降了80%。該植物在國際自然保護聯盟(IUCN)瀕危物種紅色名錄中被列為“瀕危”(2021)。
基本介紹
植物學史,形態特徵,莖,葉,花,種子,分布範圍,生長環境,生長習性,栽培繁殖,保護現狀,保護級別,種群現狀,瀕危原因,主要價值,食用價值,藥用價值,經濟價值,
植物學史
掌裂蘭系一廣布種,由於生長環境條件的不同,其植株的高矮、葉形、花的大小、唇瓣的形狀和其前部裂與不裂以及距的長短等都有一定的變化。植株高12-40厘米;葉從線狀披針形、披針形、長圓形至長圓狀橢圓形;花由幾朵至30餘朵;唇瓣卵形、卵圓形、寬的菱狀橫橢圓形至近圓形,不裂或前部3淺裂;距與子房等長或較子房短,圓筒形、圓筒狀錐形或狹圓錐形。有時在同一個植株花序上花的唇瓣其形狀、前部不裂或3淺裂以及上表面的斑紋的形狀等也會出現變化。因此,認為記載中國西藏產的O. hatagirea D. Don和它的兩個變種:var. schlaginweitii Soo和var. doniana Soo應歸入該種。
形態特徵
植株高12-40厘米。
掌裂蘭
莖
塊莖下部3-5裂呈掌狀,肉質。莖直立,粗壯,中空,基部具2-3枚筒狀鞘,鞘之上具葉。
葉
葉(3-)4-6枚,互生,葉片長圓形、長圓狀橢圓形、披針形至線狀披針形,上面無紫色斑點,長8-15厘米,寬1.5-3厘米,稍微開展,先端鈍、漸尖或長漸尖,基部收狹成抱莖的鞘,向上逐漸變小,最上部的葉變小呈苞片狀。
花
花序具幾朵至多朵密生的花,圓柱狀,長2-15厘米;花苞片直立伸展,披針形,先端漸尖或長漸尖,最下部的常長於花;子房圓柱狀紡錘形,扭轉,無毛,連花梗長10-14毫米;花蘭紫色、紫紅色或玫瑰紅色,不偏向一側;中萼片卵狀長圓形,直立,凹陷呈舟狀,長5.5-7(-9)毫米,寬3-4毫米,先端鈍,具3脈,與花瓣靠合呈兜狀;側萼片張開,偏斜,卵狀披針形或卵狀長圓形,長6-8(-9.5)毫米,寬4-5毫米,先端鈍或稍鈍,具3-5脈;花瓣直立,卵狀披針形,稍偏斜,與中萼片近等長,寬約3-5毫米,先端鈍,具2-3脈;唇瓣向前伸展,卵形、卵圓形、寬菱狀橫橢圓形或近圓形,常稍長於萼片,長6-9毫米,下部或中部寬6-10毫米,基部具距,先端鈍,不裂,有時先端稍具1個凸起,似3淺裂,邊緣略具細圓齒,上面具細的乳頭狀突起,在基部至中部之上具1個由藍紫色線紋構成似匙形的斑紋(在新鮮花其斑紋頗為顯著),斑紋內淡紫色或帶白色,其外的色較深,為藍紫的紫紅色,而其頂部為淺3裂或2裂成W形;距圓筒形、圓筒狀錐形至狹圓錐形,下垂,略微向前彎曲,末端鈍,較子房短或與子房近等長。
掌裂蘭
種子
種子非常微小,缺乏儲存養分。
分布範圍
分布於阿富汗、不丹、中國(吉林、寧夏、甘肅、四川、青海、黑龍江、西藏、新疆、內蒙古)、印度(喜馬偕爾邦、查謨和克什米爾、錫金、北阿坎德邦)、尼泊爾、巴基斯坦。
掌裂蘭分布圖
生長環境
掌裂蘭生於海拔600-4100米的山坡、溝邊灌叢下或草地中。在野外,位於樹線附近、在鐘花杜鵑(Rhododendron campanulatum D. Don)和糙皮樺(Betula utilis D. Don)下、混合草本草地、坡度大於25°的地區,以及北向和東北向的地區最適合其繁殖。該物種是淺根植物,生長在排水良好、肥力低的土壤中。
掌裂蘭
生長習性
掌裂蘭是一種生長緩慢且再生能力差的物種。種子發芽率非常低(0.2-0.3%),營養繁殖也很慢。該物種表現出傳粉者特異性,並且對菌根關聯有發芽要求。該物種與土壤中的真菌共生關係使它們能夠獲得足夠的養分,並能夠與其他植物成功競爭。它們對肥料或殺菌劑的添加非常敏感,因為這些可能會傷害共生真菌,從而殺死蘭科植物。該植物在一到幾年內成熟並開花 - 通常有很高的種子產量,這使得該物種能夠重新殖民它們已經消失的棲息地,並在新的棲息地建立種群。
掌裂蘭
栽培繁殖
種子繁殖:表面播種,最好在成熟後儘快在溫室中播種,不要讓培養土變乾。這種植物的種子非常簡單,它有一個微小的胚胎,被一層保護細胞包圍。它含有很少的食物儲備,並依賴於與土壤中的一種真菌的共生關係。真菌菌絲侵入種子並進入胚胎細胞。蘭科植物很快開始消化真菌組織,這作為植物的食物供應,直到它能夠從土壤中的腐爛物質中獲取養分。最好使用一些在已建立植物周圍生長的土壤,以引入真菌,或者在同種植物周圍播種種子,並讓幼苗生長,直到它們足夠大可以移動。
秋季分割:植物對根部干擾非常不耐受,任何移動或分割都應在秋季嘗試,保持植物周圍有一大團土壤。
塊莖分割:隨著花朵凋謝。該物種在其生長季節結束時產生一個新的塊莖。如果在其花朵凋謝時從植物中移除,對植物的衝擊可以刺激新塊莖的形成。塊莖應被視為處於休眠狀態,而剩餘的植物應被鼓勵繼續生長,以便它有時間產生新的塊莖。
分株繁殖:也可以在植物有完全發育的葉叢但尚未開花時進行。將整個新生長從它生長的舊塊莖上移除並上盆栽,切口在莖的底部,但留下一個或兩個根仍然附著在舊塊莖上。這通常可以在不挖出植物的情況下完成。舊塊莖應該發育一到兩個新的生長,而新的葉叢應該繼續生長並正常開花。
掌裂蘭
保護現狀
保護級別
列入《世界自然保護聯盟瀕危物種紅色名錄》(IUCN 2021年 ver 3.1)——瀕危(EN)。
列入《瀕危野生動植物種國際貿易公約》(CITES)——附錄Ⅱ。
種群現狀
掌裂蘭的總種群數量尚不清楚。Chandra等人(2021)報告了印度喜馬拉雅山脈北阿坎德邦26個地點的平均密度和頻率。密度從0.2-2.2個個體/平方米不等,頻率在20-80%之間。Singh等人(2021)報告了北阿坎德邦印度喜馬拉雅山脈的密度在0.70-2.43個個體/平方米之間。在北阿坎德邦印度喜馬拉雅山脈,受保護地點的密度從2.02–2.19個個體/平方米不等,未受保護地點的密度在1.13–1.89個個體/平方米之間(Bhatt等人2005)。在印度喜馬拉雅山脈的查謨和克什米爾以及拉達克中央直轄區,27個地點的密度從0.15-16.1個個體/平方米不等,頻率在10-90%之間(Wani等人2021)。在印度喜馬拉雅山脈查謨和克什米爾的蘇魯山谷,其密度範圍為0.44-8個個體/平方米(Rinchen等人2012)。在尼泊爾,達魯拉地區未受保護地點的種群密度範圍為0.60-0.79個個體/平方米,而馬南地區受保護地點的種群密度範圍為0.70-2.16個個體/平方米(Chapagain等人2021)。
關於密度的數據似乎零散;然而,大多數關於掌裂蘭種群結構的報告都對其下降的亞種群表示擔憂。Ved和Tandon(1998)將該物種在印度喜馬拉雅山脈喜馬偕爾邦列為極危。野生亞種群數量顯著減少,自20世紀90年代末開始貿易以來,至少80%的種群數量下降被懷疑。鑒於這些下降,過去10年的種群下降被懷疑在48%到65%之間,分別使用指數下降和線性下降計算。由於發芽潛力差、高貿易價值以及預期在未來可預見的時期(未來10年)種群數量的持續下降,該物種可能符合A3bcd標準下的瀕危條件,但對未來種群的預測尚未充分發展,無法做出這一決定。根據過去10年超過50%的種群下降,該物種符合A2bd標準下的瀕危條件。
瀕危原因
該物種因其藥用價值的塊莖而被過度開發。該物種壽命短,代際長度為1.5-1.75年。該物種的繁殖限制已被充分認識,營養繁殖非常緩慢,種子發芽率約為0.2-0.3%。大量採集和非法貿易對其生存構成了嚴重威脅。在大多數地點,該物種的密度很低。該物種還受到棲息地喪失、牲畜放牧、森林砍伐和氣候變化的威脅。自20世紀90年代末該物種貿易增加以來,野生種群數量顯著減少,至少懷疑種群數量下降了80%。
該物種受到破壞性採集、高貿易價值、分布範圍有限、種群密度低、發芽率差、棲息地特異性、牲畜放牧、缺乏栽培協定和氣候變化的威脅。對該物種的過度開發在其分布範圍的大部分地區都很普遍。所有生長階段的植物都被採集以滿足不穩定的市場。在其棲息地內,多穗蓼的擴張也正在成為對該物種的一個常見威脅。
掌裂蘭
主要價值
食用價值
塊莖是Salep的來源。Salep是一種細膩的白色至黃白色的粉末,通過乾燥塊莖並將其磨成粉末獲得。它是一種類似澱粉的物質,味道甜中帶點不愉快的氣味。據說非常有營養,可以製成飲料或添加到穀物中,並用於製作麵包等。據說一盎司的Salep 就足以維持一個人一天的生活。
藥用價值
該物種被廣泛套用於阿育吠陀(Ayurveda)、悉達(Siddha)、尤那尼(Unani)、阿姆奇(Amchi)和其他替代醫學體系。它被用來治療痢疾、腹瀉、胃炎、慢性發熱、咳嗽、胃痛、燒傷、全身虛弱、神經紊亂和癱瘓。塊莖的粉末或“Salep”(一種由塊莖粉末製成的飲料)具有壯陽、營養和恢復活力的作用。塊莖粉末或“Salep”也被用來控制出血。塊莖含有多種生物活性化合物,包括達克托林(dactylorhins)、達克托糖(dactyloses)、葡萄糖苷、澱粉和白蛋白。從該物種中分離出的次級代謝產物,如達克托林A-E、達克托糖A-B等,顯示出抗氧化、抗菌、防腐、抗癌和增強免疫活性。
經濟價值
掌裂蘭從尼泊爾到中國的貿易始於20世紀90年代末,至今仍在繼續(Bhattarai 等人,2002年)。尼泊爾每年大約收穫5噸塊莖,用於準備出口的“Salep”(Vaidya等人,2002年)。全球對該物種的年需求量約為5000噸,相當於大約71583美元(Dhiman等人,2019年)。來自印度的最新估計顯示年貿易量約為10-50噸(Goraya等人,2017年)。乾塊莖的價格為每千克68.88-89.54美元(Singh 等人,2021年),而從該物種塊莖中提取的活性成分達克托林E的價格約為每毫克311.49美元(Dhiman等人,2019年)。
