基本介紹
- 中文名:噬菌體T7
- 所屬類型:病毒

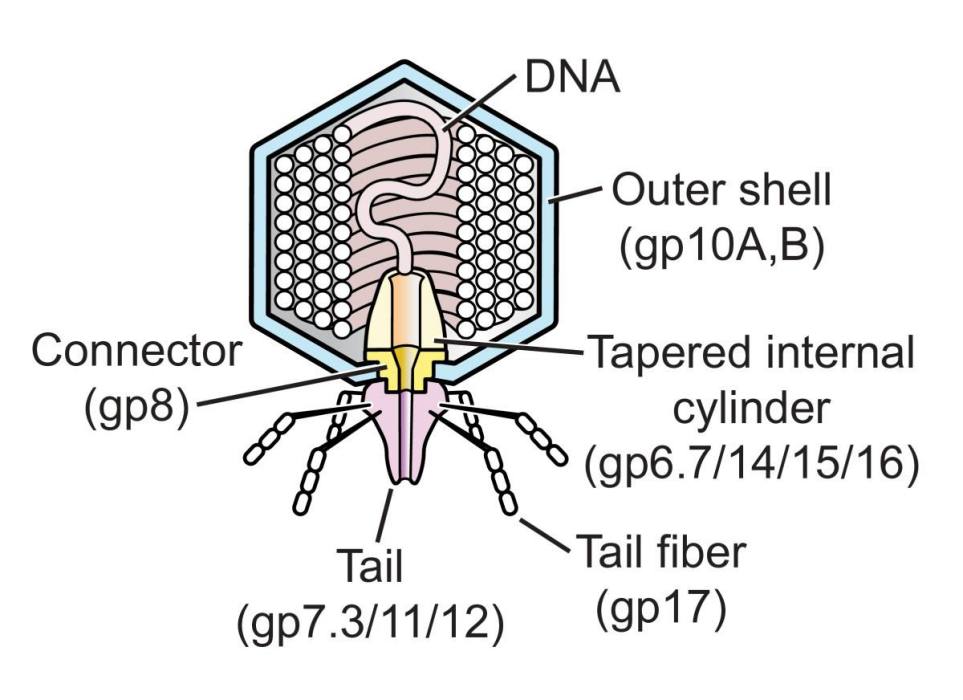
噬菌體T7是一種烈性的、具有不能收縮的短尾的多面體噬菌體,病毒粒子含線狀、雙鏈、末端過剩的DNA,與λ噬菌體不同,DNA不具單鏈的末端區。宿主為大腸埃希氏菌(F'scherichiq cdi )。如同其它有尾噬菌體.噬菌...
T7噬菌體是感染大腸桿菌(志賀氏菌屬和巴斯德菌屬也是T7宿主)的烈性噬菌體。病原介紹 分類類型 種 分類 有尾噬菌體目>短尾噬菌體科>自複製短尾噬菌體亞科>T7樣噬菌體屬>腸桿菌噬菌體T7 GeneBank編號 [V01156]基本特性 病毒顆粒有20面體的頭部和非常小的尾,結構較複雜。頭部由5個不同的蛋白質組成。基...
T系噬菌體[T-phage] 為七種的大腸桿菌噬菌體T1-T7的總稱(T為type的縮寫)。在完全偶然的情況下發現其中的T2、T4、T6三種噬菌體在性質和形態方面有許多相似之處,所以把它們稱為T偶數噬菌體,T偶數噬菌體為烈性噬菌體(裂解類型)。此後又進一步證明,這些噬菌體的DNA分子有許多部分相同。與此相應地把T1、T3...
噬菌體(bacteriophage, phage)是感染細菌、真菌、藻類 、放線菌或螺旋體等微生物的病毒的總稱,因部分能引起宿主菌的裂解,故稱為噬菌體。二十世紀初在葡萄球菌和志賀菌中首先發現。作為病毒的一種,噬菌體具有病毒的一些特性:個體微小;不具有完整細胞結構;只含有單一核酸。可視為一種“捕食”細菌的生物。噬菌體...
《利用T7噬菌體展示技術尋找骨關節炎生物學標誌物的研究》是依託上海交通大學,由王曉慶擔任項目負責人的青年科學基金項目。項目摘要 骨關節炎(OA)是老年人生活質量下降的主要原因之一,至今OA仍缺乏預防、早期診斷和治療的手段,確診時關節多已出現不可逆的病變,增加了病人痛苦和治療困難。自身免疫在OA發病中...
有尾噬菌體目Caudovirales成員的形態為,病毒粒子由頭、尾和固定細胞器(fixation organelles),無囊膜。頭部是等軸的(isometric)或長形的(elongated),20面體或由等軸三角組成(其中T=1、T=7、T=9、T=12、T=13、T=16)。殼粒很少能看到,棱通常顯示為光滑的薄壁(2-3nm)。估計的殼粒數在17-812之間...
T7RNA聚合酶(英語:T7 RNA Polymerase)是一種RNA聚合酶,分子量約99kDa。專門催化5'→3'方向的RNA形成過程。T7RNA聚合酶具有高度啟動子專一性,且只會轉錄T7噬菌體中位於T7啟動子下游的的DNA或DNA複製品。此酶在合成RNA的過程中,需要DNA模板與鎂離子(Mg2+)作為輔因子。牛血清蛋白(bovine ...
本課題擬利用反義RNA調控噬菌體T7表達系統的方法,構建與宿主菌正交的轉錄元件,用以解決基因線路的通用性、高效性和可調節性問題。研究首先測定大腸桿菌DE3溶源菌中T7 RNAP的非致死表達量;然後利用報告基因(gfp)構建具有通用性、高效性和可調節性的與宿主正交的正交轉錄元件,研究其在模式工業菌株(大腸桿菌、枯草...
本書介紹各種噬菌體的結構、轉錄、複製、基因表達及在基因工程中的套用等方面的新進展。全書共分11章,包括:單鏈RNA噬菌體、雙鏈RNA噬菌體、絲狀噬菌體等。圖書目錄 前言 目錄 1.單鏈RNA噬菌體 2.雙鏈RNA噬菌體Ф6 3.ФX174噬菌體 4.絲狀噬菌體 5.T7 噬菌體 6.T4噬菌體 7.Ф29噬菌體 8.PRD1...
右側含有一個卡那黴素抗性基因kanR,一個噬菌體P1來源的複製子P1,該複製子能使低拷貝數的質粒在大腸桿菌中得到複製;一個可誘導強複製子(Pl裂解性複製子).該複製子能夠被用於增加質粒的拷貝數;還有一個選擇性標記sacB,該標記含有一個克隆位點(BamHI).位點兩端分別是噬菌體SP6和T7的啟動子 ...
噬真菌體 噬真菌體(mycophage)又稱真菌病毒。一類專性寄生於真菌細胞中的病毒,都是多面體形或球形顆粒,具雙鏈DNA。已在50多屬的真菌細胞中發現,如傘菌屬、啤酒酵母、青黴、麴黴、毛霉中。在真菌孢子中也有病毒存在。
所謂NASBA(Nuclear acid sequence-based amplification,核酸依賴性擴增檢測技術)是一項以RNA模板進行等溫核酸擴增並能實時觀測結果的檢測方法。該技術的檢測反應有賴於AMV逆轉錄酶、噬菌體T7RNA多聚酶、核糖核酸酶H、兩種特別設計的特異性寡核苷酸引物和分子信標探針共同協作而完成。NASBA全稱是nucleic acid sequence-...
測序酶(SequenaseTM)是一種經過化學修飾的T7噬菌體DNA聚合酶。這酶原來具有很強的3'→5'外切核酸活性,經過修飾後, 這一活性大部分均被消除。測序酶持續合成能力很強,聚合速率很高,對諸如dITP和7-脫氮-dGTP等用於提高分子辨率使測序凝膠某些區段上的壓縮條帶得以分開的核苷酸類似物具有廣泛的耐受性。它是...
對應的噬菌體 T7 T7 T-偶數 T7 λ T-偶數 生理特性 沉降係數:526~550 490 539 820 353 754 乾重(D) :53.4×10⁴ 50.9×10⁴ 未知 未知 未知 未知 CsCl浮力密度 :1.48 1.48 1.498 1.48 1.501 1.49 對Mg2+的信賴 :依賴(1mol/L) 依賴(1mol/L) 依賴 不依賴 依賴 不依賴 致失活...
該菌株用於高效表達克隆於含有噬菌體T7啟動子的表達載體(如pET系列)的基因。T7噬菌體RNA聚合酶位於λ 噬菌體DE3區,該區整合於BL21的染色體上。該菌適合表達非毒性蛋白。基因型:F-,ompT, hsdS(rBB-mB-),gal, dcm(DE3)。BL21(DE3) pLysS菌株 該菌株含有質粒pLysS,因此具有氯黴素抗性。PLysS含有表達T...
模板鏈的每一個A、每一個G或每一個T的位置上。DNA聚合酶 通常用於雙脫氧法序列測定的有幾種不同的酶,其中包括大腸桿菌DNA聚合酶I的Klenow片段(Sanger等,1977),反轉錄酶(見文獻,如Mieredorf和Prfeffer,1987)經過修飾消除了3'→5'外節酶活性的T7噬菌體DNA聚合酶(Sequenase)和(測序酶2.0),(Tabor...
該菌株用於高效表達克隆於含有噬菌體T7啟動子的表達載體(如pET系列)的基因。T7噬菌體RNA聚合酶位於λ 噬菌體DE3區,該區整合於BL21的染色體上。該菌適合表達非毒性蛋白。基因型:F-,ompT,hsdS(rBB-mB-),gal,dcm(DE3)。BL21(DE3) pLysS菌株 該菌株含有質粒pLysS,因此具有氯黴素抗性。PLysS含有表達T7...
引用示例 以當今大腸桿菌表達系統主流的T7啟動子為例:T7啟動子(T7 promoter),是來自於T7噬菌體的能夠對T7 RNA聚合酶有特異性反應的強啟動子,是啟動T7噬菌體基因 轉錄的一段序列。T7 RNA聚合酶能選擇性的激活T7噬菌體啟動子的轉錄,其合成mRNA的速度比普通大腸桿菌的RNA聚合酶快5倍左右。
T7啟動子系統是常用的表達系統,含有T7啟動子、核糖體結合位點、起始密碼子、多克隆位點和轉錄終止子。T7啟動子的RNA聚合酶有特殊菌株的基因組表達,該聚合酶基因以噬菌體溶源途徑整合入細菌基因組,由IPTG誘導表達。在表達載體上構建好融合蛋白基因後,轉入宿主菌,在IPTG的誘導下表達出融合蛋白。
指因病毒粒子中所含有的核酸量的增減而引起病毒粒子的飄浮密度發生變化的突變株。λ,T7等噬菌體DNA發生部分缺失而變短時,若缺失部分不含有必不可少的信息,則也能形成感染粒子。也有因整合了宿主菌的DNA片斷而分子量變得比野生型更大的。密度突變株 density mutant 雖然這些噬菌體粒子的DNA含量不同,但外殼蛋白...
在對數生長期可以測定噬菌體μ和k的數量。實驗結果表明,噬菌體μ插入到ilv附近,不論是在右邊或左邊,相對產量都是最高,而插入ilv的180°的位置,產量最低。從這個實驗可以得出結論:E.coli DNA的複製從ilv基因開始,雙向等速進行,用放射自顯影方法也可以得到有關複製原點和方向的資料。用電子顯微鏡觀察噬菌體T7...
他先後分離了fd噬菌體、T7噬菌體的A2及A3啟動子、h噬σ菌體的PR啟動子及大腸桿菌乳糖操縱子的UV5啟動子等5段被酶保護的區域,並進行了序列分析,以後又有人做了50多個啟動子的序列分析後發現,在被保護區內有一個由5個核苷酸組成的共同序列,是RNA聚合酶的緊密結合點,稱為Pribnow區(Pribnow box),這個區...
該菌株用於高效表達克隆於含有噬菌體T7啟動子的表達載體(如pET系列)的基因。T7噬菌體RNA聚合酶位於λ噬菌體DE3區,該區整合於BL21的染色體上。該菌適合表達非毒性蛋白。基因型:F-,ompT,hsdS(rBB-mB-),gal,dcm(DE3)3:BL21(DE3)pLysS菌株 該菌株含有質粒pLysS,因此具有氯黴素抗性。PLysS含有表達T7溶菌...
λ,T7等噬菌體DNA發生部分缺失而變短時,若缺失部分不含有必不可少的信息,則也能形成感染粒子。也有因整合了宿主菌的DNA片斷而分子量變得比野生型更大的。雖然這些噬菌體粒子的DNA含量不同,但外殼蛋白質的量是一定的,所以它們的密度與野生型噬菌體的密度不一樣。用氯化銫之類的密度梯度離心法能分離出相應的...
許多載體如pBluescript, pGEM等均帶有來自噬菌體SP6或E.coli噬菌體T7或T3的啟動子,它們能特異性地被各自噬菌體編碼的依賴於DNA的RNA聚合酶所識別,合成特異性的RNA。在反應體系中若加入經標記的NTP,則可合成RNA探針。RNA探針一般都是單鏈,它具有單鏈DNA探針的優點,又具有許多DNA單鏈探針所沒有的優點,主要是:...
四、 T7噬菌體DNA聚合酶 五、 耐熱DNA聚合酶 六、 反轉錄酶 七、 末端轉移酶 第四節 其他分子克隆工具酶 一、 依賴於DNA的RNA聚合酶 二、 連線酶 三、 T4多核苷酸激酶 四、 鹼性磷酸酶 五、 核酸酶 六、 核酸酶抑制劑 七、 瓊脂糖酶 八、 DNA結合蛋白 九、 其他酶 思考題 主要參考文獻 第三章 ...
蛋白質組研究的另一個重要內容是建立蛋白質相互關係的目錄。生物大分子之間的相互作用構成了生命活動的基礎。組裝基因組各成分間的詳盡作圖已在T7噬菌體(55個基因)獲得成功。如何在模式生物(如酵母)和人類基因組的研究中建立自動方法,認識不同的生化通路,是值得探討的問題。(3)生物信息學的套用 目前,生物...
雖然大多數原核生物mRNA不需要加工即可行使功能,但也存在例外情況,例如T7噬菌體DNA的早期基因被大腸桿菌RNA聚合酶轉錄後會產生較大的mRNA前體,該前體包含一個啟動子、五個結構基因和一個終止子,隨後被RNA聚合酶Ⅲ剪下為五個成熟的RNA分子。真核生物 真核生物mRNA的轉錄和加工過程具有顯著的複雜性,主要體現在其...
1986年7月畢業於華東理工大學生物化學工程系生物化學工程專業,獲工程學學士學位。畢業後在中科院上海生物工程實驗基地工作。1997年10月畢業於美國德州大學衛生研究中心聖安東尼奧分校生物化學系生物化學專業,獲博士學位。研究方向 主要從事基因工程菌在發酵過程中的穩定性的研究。主要貢獻 讀博期間,闡明噬菌體T7 RNA聚合...
限制酶內切好的質體DNA經phenol/chloroform萃取的後,即可用來進行胞外轉錄反應。由於RNA聚合酶一般由數個次單元組合而成,早先要在試管內套用RNA聚合酶的轉錄活性合成RNA並非易事,但這個問題在SP6, T3 及T7 等噬菌體的RNA聚合酶陸續被發現以後,情況已完全改觀。這主要是因為這類RNA聚合酶由一條多胜肽 (...
