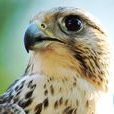
獵隼(拉丁學名:Falco cherrug),季候鳥,大型猛禽。主要以鳥類和小型動物為食。分布廣泛,中國和中歐、北非、印度北部、蒙古常見。中國國家二級重點保護動物。
基本介紹
外形特徵,總體特徵,體態特徵,分布情況,分布範圍,分布狀況,亞種分化,生活環境,生活習性,生長繁殖,種群現狀,保護級別,基因研究,
外形特徵
總體特徵
獵隼體重510-1200克,體長278-779毫米。獵隼是體大且胸部厚實的淺色隼。頸背偏白,頭頂淺褐。頭部對比色少,眼下方具不明顯黑色線條,眉紋白。上體多褐色而略具橫斑,與翼尖的深褐色成對比。尾具狹窄的白色羽端。下體偏白,狹窄翼尖深色,翼下大覆羽具黑色細紋。翼比游隼形鈍而色淺。幼鳥上體褐色深沉,下體滿布黑色縱紋。叫聲似游隼但較沙啞。 獵隼
獵隼體態特徵
眼下方具不明顯黑色線條,眉紋白 ;頭頂磚紅色,具暗褐色縱紋,後頸色較淡,具較窄的紋;頰部白色,背、肩、腰暗褐色,具磚紅色點斑和橫斑;尾黑褐色,具磚紅色橫斑;翅亦黑褐色,飛羽內翈和覆羽具磚紅色橫斑和淡色羽端;下腹、尾下覆羽和覆腿羽為白棕色,具較細的暗褐色縱紋。雄性長度:45厘米 ;雌性長度:55厘米。雄性翼展:100 -110厘米 ;雌性翼展:120-130厘米。雄性重量:730 -990克 ;雌性體重:970-1300克。虹膜-褐色;嘴-灰色,蠟膜淺黃;腳-淺黃。 獵隼頭部特寫
分布情況
分布範圍
中歐、北非、印度北部、中亞至蒙古及中國北方。
分布狀況
不常見季候鳥。亞種milvipes繁殖於新疆阿爾泰山及喀什地區、西藏、青海、四川北部、甘肅、內蒙古及至呼倫池;有記錄經遼寧及河北;越冬在中部及西藏南部。隼類的貿易驅使人們捕捉而導致種群數量下降。亞種altaicus(註:亞種altaicus有時作為獨立物種(稱為阿爾泰隼),甚至作為矛隼的一亞種。)為甚罕見季候鳥。繁殖於新疆西北部的天山;越冬於新疆西部喀什地區、青海湖周圍及內蒙古中部。
亞種分化
| 中文名 | 拉丁學名 | |
|---|---|---|
1. | 獵隼指名亞種 | Falcon cherrug cherrug |
2. | Falcon cherrug milvipes |
生活環境
獵隼主要生活在內陸草原和丘陵地區,棲息于山區開闊地帶、河谷、沙漠和草地。在無林或僅有少許樹木的曠野和多岩石的山丘地帶活動,常常可以瞥見它那一掠而過,搏擊長空的英姿。 獵隼的繁殖棲息地
生活習性
獵隼主要以中小型鳥類、野兔、鼠類等動物為食。除此之外,兇猛的獵隼還可以攻擊金雕等大型兇猛禽類,不過通常不是為了食物,主要是為了驅逐大型禽類;這種現象,在蒙古草原上曾多次出現。每當發現地面上的獵物時,獵隼總是先利用它那像高速飛機一樣可以減少阻力的狹窄翅膀飛行到獵物的上方,占領制高點,然後收攏雙翅,使翅膀上的飛羽和身體的縱軸平行,頭則收縮到肩部,以每秒75—100米的速度,成25度角向獵物猛衝過去,在靠近獵物的瞬間,稍稍張開雙翅,用後趾和爪打擊或抓住獵物。此外,它還可以像殲擊機一樣在空中對飛行的山雀、百靈等小鳥進行襲擊,追上獵物後,就用翅膀猛擊,直至獵物失去飛行能力,從空中下墜,再俯衝下來將其捕獲。 獵隼捕食野雞
生長繁殖
種群現狀
獵隼易於馴養,經馴養後是很好的狩獵工具,歷史上就有獵手馴養獵隼。在阿拉伯國家,馴養隼類是一種時尚,財富和身份的象徵。因此,國內有一些不法分子非法捕捉獵隼從事走私活動,給該物種造成了較大危脅。隼類的貿易驅使人們捕捉而導致種群數量下降。 飛翔的獵隼
飛翔的獵隼蒙古國政府在2012年決定,將獵隼確定為蒙古國“國鳥”。蒙古國官方數據顯示,蒙古國境內現存獵隼約6800隻。
據蒙古國官方統計,從2000年至2013年左右,蒙古國共出口獵隼約3000隻,2011年出口240隻,2012年允許出口150隻,每隻售價約1.2萬美元,主要出口到科威特、卡達、沙烏地阿拉伯、阿聯等國。在阿拉伯國家,馴養隼類是一種時尚、財富和身份的象徵。 隼類繁育研究中心
蒙古國政府於2012年1月12日宣布未來五年內禁止出口“國鳥”獵隼。此舉被認為對保護獵隼種群生存繁衍具有積極意義。
獵隼是深受蒙古國人民喜愛的猛禽,被世界自然保護聯盟列入瀕危物種紅色名錄。每年夏季,約有6800隻獵隼在蒙古國停留生息。
此外,蒙古國境內在2012年左右偷獵獵隼行為也有所增加。偷獵者通過出售捕獲的獵隼牟取暴利。為保護獵隼種群,蒙古國政府已加大打擊非法偷獵行為力度。
保護級別
世界自然保護聯盟紅色名錄列為:瀕危(EN)
中國國家重點保護動物等級:二級
基因研究
來自英國卡迪夫大學、深圳華大基因研究所等處的研究人員2013年3月完成了對獵隼和游隼的基因組測序,提供了關於捕食生物生活方式演變的一些新認識,相關論文“Peregrine and saker falcon genome sequences provide insights into evolution of a predatory lifestyle”發表在3月24日的《自然—遺傳學》(Nature Genetics)雜誌上。 獵隼降落在樹樁上
為了探討捕食生物適應的進化基礎,來自卡迪夫大學和華大基因的研究人員對獵隼和游隼進行全基因組測序,並獲得了關於進化和捕食方式選擇性的全基因組證據。研究人員利用Illumina深度測序組裝出了長度約為1.2 Gb的基因組,測序覆蓋度達100倍。
利用同源性和de novo分析方法結合RNA測序數據,研究人員預測出了獵隼和游隼分別具有16,204和16,263個基因。利用以同源性為基礎的方法,研究人員對大約92%的這些基因進行了功能性注釋。
利用相關基因組,研究人員開展了比較基因組分析評估了隼的進化和新變化。研究人員對游隼、獵隼、雞、斑胸草雀和火雞中的同源基因進行了分析。結果表明雞和火雞組成了一個進化分支,斑胸草雀和隼為另一個進化分支。分析獵隼和游隼序列,表明兩者最近的共同祖先存在於210萬年前。超過99.6%的游隼基因組與獵隼基因組在基因區域上是共線的。 獵隼學習飛翔
此外,相比於雞和斑胸草雀,嗅覺受體基因目錄顯示游隼和獵隼中的完整嗅覺受體基因也是最少的,但它們的嗅球比率要高於斑胸草雀,與雞相似。這兩個性狀過去被認為與嗅覺功能呈正相關。此外,在雞和斑胸草雀中存在的嗅覺受體γ-c 簇基因擴張,在獵隼和游隼並不存在,研究人員認為這有可能與獵隼和游隼依賴於視覺定位獵物有關。
此外,研究人員通過比較獵隼、游隼和現有鳥類基因組,發現了一些與循環(例如血紅素合成)、神經系統、嗅覺和鈉離子轉運相關的進化基因發生了快速進化。與雞形目鳥類比較,揭示出線粒體呼吸鏈也發生了顯著的快速改變。此外,研究人員還發現在所有鳥類基因組中,獵隼和游隼的每時間單位基因損失速率是最快的。 獵隼飛行
獵隼飛行新研究提供了基因組測序數據為未來研究中檢測鳥類,尤其是猛禽的進化和適應提供了一個重要的資源。獵隼和游隼廣泛分布於全球,顯示出多種多樣的地域表型和行為,它們的保護情況隨棲息地範圍存在巨大的差異,當前獵隼已被全球列為瀕危物種。獵隼和游隼都有遷徙和定居物種,了解這一廣泛多樣性的遺傳基礎,將為長期保護它們提供了一個有價值的工具。
註:圖冊來源
