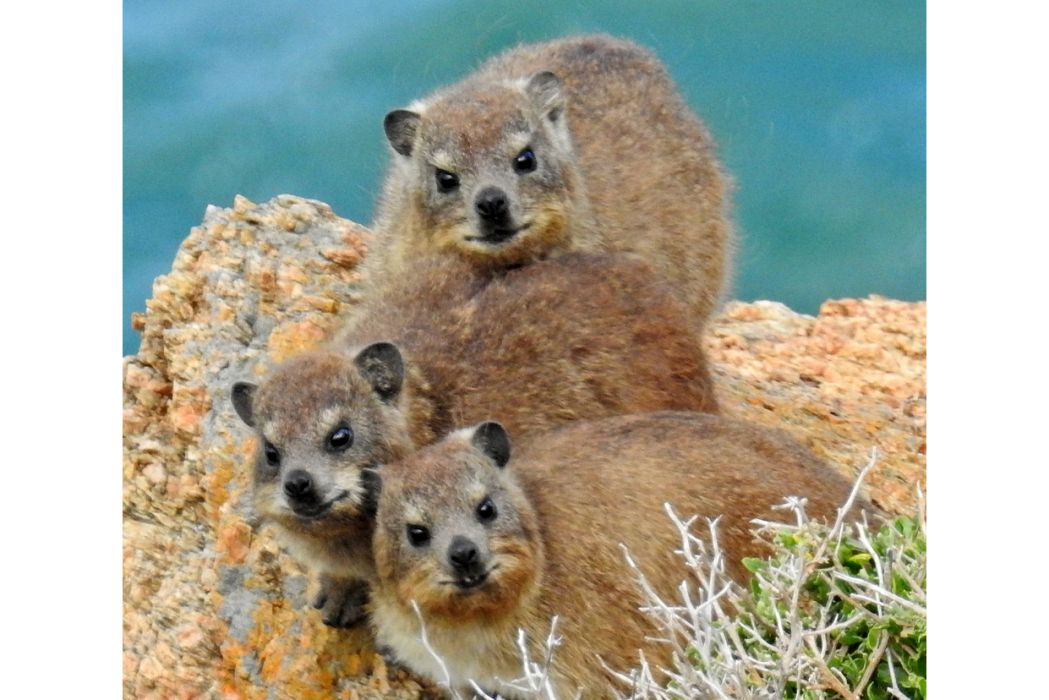
岩蹄兔(學名:Procavia capensis)是蹄兔科蹄兔屬動物。岩蹄兔體型小而粗壯,四肢短,尾巴短小。儘管耳朵小而圓,但外觀類似兔子。背部中央有一塊黑色毛髮覆蓋的腺體區域。腳短,底部有橡膠狀的肉墊,下面有許多汗腺。這些汗腺不僅用於散熱,還能為腳底在岩石表面提供極好的抓地力。儘管岩蹄兔看起來像齧齒動物,但它們與大象和海牛的進化關係更為接近。
岩蹄兔廣泛分布於非洲大部分地區和阿拉伯半島,除了剛果盆地和馬達加斯加。它是適應乾旱環境的蹄兔種類之一,其分布範圍包括納米布、撒哈拉和阿拉伯沙漠中的乾旱山區。棲息於多種生境,從乾旱的沙漠到雨林,分布海拔從海平面到肯亞山的4300米。其飲食包括各種草本植物、雜草和灌木,偏好新芽、嫩芽、水果和漿果。它們有特殊的牙齒,用於研磨食物,並在岩石棲息地中花費大量時間尋找植物。
岩蹄兔被捕捉以獲取皮毛和肉。在沙烏地阿拉伯,它們被非法捕獵以獲取運動和肉食。這種捕獵在某些地點似乎較為嚴重,可能是該物種在該國分布範圍受限的主要原因。2014年,列入《世界自然保護聯盟瀕危物種紅色名錄》中保護級別為無危(LC)。
基本介紹
動物學史,形態特徵,形態,牙齒,棲息環境,分布範圍,生活習性,行為,交流,食性,天敵,生長繁殖,繁殖方式,壽命,下級分類,保護現狀,保護級別,種群現狀,主要價值,
動物學史
一些學者(包括Hahn, 1934和Kingdon, 1971)將該物種劃分為多個獨立物種,例如開普蹄兔(P. capensis)、阿比西尼亞蹄兔(P. habessinica)、約翰斯頓蹄兔(P. johnstoni)和西部蹄兔(P. ruficeps)。然而,分類識別出的17個亞種。然而,其中一些亞種的有效性存在模糊之處。在此,根據最近的分類(Olds和Shoshani, 1982;Schlitter, 1993;Shoshani, 2005;Hoeck和Bloomer, 2013),將其視為單型種。
形態特徵
形態
蹄兔是次蹄類哺乳動物中體型最小的動物,外觀類似於土撥鼠。這種物種的成員有一對長而強壯、類似獠牙的門牙,其臼齒與犀牛的頰齒相似。成年個體的體長範圍為305至550毫米,尾長範圍為11至24毫米。後足長度範圍為65至76毫米,耳長範圍為27至38毫米。這些蹄兔體型粗壯,體重可達4.3千克。雄性(4千克)略大於雌性(3.6千克),且面部特徵更圓潤,身體更瘦,頸部更粗。雄性的獠牙比雌性的更大、更尖銳。雄性還擁有更大的喉部和更大的喉囊,這有助於放大它們的領地叫聲。蹄兔的眼睛中有一種特殊的膜,稱為遮光膜,被認為可以保護眼睛免受陽光直射。
岩蹄兔的前足有四個腳趾,為平足,而後足有三個腳趾,為半趾行性。除了內側後趾有一個用於梳理毛髮的爪子外,所有腳趾都有類似蹄的圓形指甲。岩蹄兔的腳為中軸腳,對稱平面通過第三趾。腳底有大型黑色肉墊,由汗腺分泌的液體使其保持濕潤,從而增加其在岩石表面的附著力。
岩蹄兔的皮毛濃密而粗糙,有厚實的底毛和散落的長保護毛。背部和嘴巴周圍有長而黑的觸鬚,用作觸覺感受器。皮毛顏色在亞種之間差異很大,從灰色到黃棕色再到深棕色不等。背部通常比側面顏色更深,而腹部則呈較淺的奶油色。在非洲開普地區,皮毛顏色與環境濕度相對應:生活在濕潤地區的動物皮毛顏色更深,而生活在乾旱地區的動物皮毛顏色更淺。背部有一塊被對比色長毛包圍的斑塊,顏色可能是黑色、黃色或橙色。在這塊斑塊下方是一個裸露的區域,包含一個特定於蹄兔的背腺,分泌信息素,可能用於標記岩石並幫助幼崽識別母親。在繁殖季節,信息素的分泌最為顯著。
牙齒
岩蹄兔用臼齒而不是門齒來啃食植物,這與其他大多數哺乳動物不同。它們的牙齒結構獨特。上頜有兩顆類似短獠牙的門齒,其橫截面形狀存在性別差異:雄性呈三角形,雌性則更圓潤。下頜有四顆門齒。
棲息環境
岩蹄兔通常生活在乾旱地區,包括沙漠、稀樹草原和灌木林。它們棲息於植被覆蓋率適中、有許多岩石裂縫和洞穴的岩石區域,這些洞穴被用作庇護所。儘管它們不會挖掘洞穴,但會棲息於其他動物(如土豚和貓鼬)廢棄的洞穴中。即使在遷徙過程中,岩蹄兔通常也不會遠離有遮蔽物或避難所的區域。
分布範圍
原產地 :阿爾及利亞、安哥拉、波札那、布吉納法索、喀麥隆、中非共和國、查德、剛果(民主共和國)、象牙海岸、吉布地、埃及、厄利垂亞、史瓦濟蘭、衣索比亞、甘比亞、加納、幾內亞、幾內亞比索、以色列、約旦、肯亞、黎巴嫩、賴索托、利比亞、馬拉威、茅利塔尼亞、莫三比克、納米比亞、尼日、奈及利亞、阿曼、盧安達、沙烏地阿拉伯、塞內加爾、獅子山、索馬里、南非、南蘇丹、蘇丹、坦尚尼亞聯合共和國、多哥、烏干達、葉門、尚比亞、辛巴威。
存在不確定:馬里、阿拉伯敘利亞共和國。

岩蹄兔分布圖
生活習性
行為
岩蹄兔群居,生活在多達80隻個體的群體中,具體數量取決於領地大小和資源豐富程度。群體通常由一隻領地雄性組成,它控制著一個由幾隻相關雌性和它們的後代組成的後宮,但也可能由多個家庭組成,每個家庭都由一隻成年雄性領導。雌性通常是定居的,可能會無限期地相互關聯。雌性遷出的情況很少,但分散的雌性在經過一段時間的敵意後可能會被其他群體接受。雌性之間沒有明確的等級制度,但年長的個體往往比年輕的個體更具統治力和警惕性。
在個體岩蹄兔群體中,領地雄性支配其他群體成員,並保持對捕食者和同種競爭對手的警惕。雄性後代在30個月大時被迫離群,但通常在17至24個月大時就會分散。領地雄性對自身的雄性後代相對寬容,但對分散的雄性非常具有攻擊性,後者可能會旅行超過2公里尋找未被占領的棲息地。在大多數情況下,附近沒有合適的棲息地,年輕的雄性被迫在群體領地邊緣的洞穴中進行防禦。當領地雄性死亡或變得虛弱時,排名最高的外圍雄性會取代他。
儘管岩蹄兔基本上是恆溫動物,但它們的體溫波動很大,如果沒有遮蔽物來抵禦極端溫度,它們就無法生存。它們採用了許多與爬行動物相同的適應行為來避免極端溫度。除非天氣非常溫暖,否則它們不會在早晨離開洞穴,通常會花一個小時左右曬太陽。覓食在曬太陽後和下午進行,大部分進食發生在傍晚。它們通常通過在陰涼處休息來避免一天中最熱的部分。它們也會避免下雨,如果天氣寒冷且下雨,蹄兔可能根本不會離開它們的洞穴。它們有時會在月光之夜活動。成年蹄兔95%的時間都在休息。休息通常涉及堆疊,通常在它們的洞穴內進行,動物們彼此疊在一起。有證據表明,休息行為與環境溫度有關。隨著溫度的升高,休息行為從堆疊變為聚集,再到單獨休息。
交流
岩蹄兔的所有感官都很發達,儘管它們的近距離視力被認為相對較差。蹄兔有多種叫聲。領地叫聲是獨特且屬特異的。在岩蹄兔中,領地叫聲響亮且重複,音量和持續時間在序列的末尾逐漸增加,然後以一系列喉音結束。成年個體還會發出推特聲或嘶嘶聲,以及在發現潛在捕食者時發出的尖銳警報聲。當受到威脅時,它們可能會發出低吼聲或磨牙。幼崽只能發出成年個體使用的21種聲音中的五種;其中三種是聲音的,包括在迷失或乞食時發出的喵喵聲,另外兩種是非聲音的。在2至15個月大之間,幼崽會發展出除了五種聲音之外的所有聲音;其中四種是成年雌性特有的,一種是成年雄性特有的。
岩蹄兔會在群體棲息地附近的岩石側面排尿。排泄物中的碳酸鈣結晶會在岩石上留下白色污漬,用於視覺交流。蹄兔還會在公共廁所排泄糞便和尿液,但目前尚不清楚這是否在嗅覺交流中發揮作用。背腺及其周圍的毛髮對於同種個體之間的交流非常重要。隨著刺激的增加,背腺的信息素分泌也會增加。在攻擊性情境中,信息素分泌伴隨著輕微的上唇捲曲和頸部毛髮豎起。在發出領地叫聲時,雄性會蹲下,抬起頭,嘴巴微微張開。蹄兔通過展示後部、後退、關閉背腺和/或壓平耳朵來表示順從。順從行為非常重要,因為簡單的互動,如接近或直接盯著另一個成年個體,可能會被視為威脅,而獠牙可能會造成致命的傷口。為了避免激怒其他個體,覓食或聚集的個體通常會背對背。
食性
岩蹄兔主要是食草動物,每次覓食時會進食多種不同的植物。然而,區域偏好已被記錄下來。例如,在肯亞西坡,人們更傾向於食用巨毛蕊花和某些雛菊屬植物;在山谷底部附近,人們食用沼澤植物;低地食物包括新芽、水果、漿果和無花果。在濕潤季節,草占飲食的78%,但在乾旱季節只有57%。在濕潤條件下,無論是濕潤季節還是降雨後,岩蹄兔更傾向於食用新芽、嫩芽和葉子。在乾旱期間,它們可能會食用粗糙的材料,如樹皮、地衣和苔蘚。每日食物消耗量隨體重變化,植物水分含量對食物攝入量有顯著影響。岩蹄兔可能會從它們的洞穴中行走60米去覓食,但在乾旱期間可能會走得更遠。覓食時,個體保持間距,並保持對潛在捕食者的警惕。
岩蹄兔的覓食習慣與有蹄類動物相似。長頸鹿和大象可能是它們最有可能的食物競爭者。蹄兔可以非常快速地進食,整個群體可能會在一天中花費不到一個小時的時間覓食。大部分覓食集中在兩個大約二十分鐘的覓食時段:一個在日出後約三小時,另一個在日落前約兩小時。岩蹄兔不會操縱或攜帶食物,它們只用腳去夠或握住樹枝。覓食時,它們通常會將頭部保持在90度角,以最大限度地利用其寬闊的嘴巴,並咬下大量的植物。通過快速大量進食,並且大部分時間都在休息,岩蹄兔能夠在資源過於稀少或營養不良的環境中生存,這些環境無法支持其他更活躍的類似體型哺乳動物。
天敵
除了高山地區外,豹子是岩蹄兔的主要捕食者。蹄兔還可能被蛇(如埃及眼鏡蛇和蝰蛇)、鷹(如維爾雷克斯鷹和冠鷹)、貓頭鷹、豺、非洲野狗以及各種貓科動物(如藪貓、獰貓和獅子)捕食。新生幼崽有時會被獴捕食。岩蹄兔通過保持警惕並靠近遮蔽物覓食來躲避捕食者。個體會立即對領地雄性的警報叫聲和其他物種(如灌叢蹄兔和某些鳥類)的叫聲做出反應。蹄兔還會通過使用比棲息地中大多數捕食者直徑更小的洞穴來躲避捕食者。它們還被發現在裝死或在洞穴的安全性下一起工作以嚇跑較小的捕食者。
生長繁殖
繁殖方式
岩蹄兔是多配偶制的,一隻領地雄性可以控制一個由3到7隻雌性組成的後宮,領地面積小於4000平方米。交配前,雄性通常會發出叫聲,然後接近一隻願意接受的雌性,此時它的陰莖和背斑會勃起,同時搖頭晃腦。儘管沒有明顯的發情跡象,但背腺分泌物的數量或質量可能會隨著發情而變化。如果雌性不願意交配,它們可能會攻擊接近的雄性。願意交配的雌性會倒退著靠近雄性,並將肛門生殖區靠在其側腹和胸部。雄性隨後用前肢抓住雌性片刻,完成交配。領地雄性更傾向於與成熟的雌性交配。外圍雄性通常只能與28個月以下的亞成年或年輕成年雌性交配成功。不同屬的蹄兔雄性陰莖結構不同,這有助於在共生時實現生殖隔離。
岩蹄兔季節性繁殖(例如,在肯亞,繁殖期為8月至11月),出生時間與雨季同步。在繁殖季節,雄性的領地性顯著增強,表現為叫聲和攻擊性行為的頻率大幅增加,這些行為與睪丸體積的增加相對應。在繁殖季節,睪丸的體積可能會比正常大小增加20倍以上。在繁殖季節之外,不會發生精子生成。妊娠期為6至8個月,對於如此小體型的哺乳動物來說,這異常漫長。岩蹄兔的妊娠期延長被認為反映了其祖先體型較大的事實。雌性在分娩臨近時會變得更加具有攻擊性,並與其他懷孕的雌性暫時形成隔離的哺乳群體。分娩在黑暗中進行,雌性會隨著宮縮發出嘶啞的尖叫聲。每窩產仔數為1至6隻,平均為2.4隻,占母體體重的10.8%。新生幼崽體型較大,出生時發育良好,眼睛完全睜開,全身覆蓋完整的毛髮,體重在170至240克之間。幼崽在出生後兩天就能跳躍,第三或第四天開始進食。新生幼崽在兩周大時就能吃固體食物。斷奶通常在出生後三個月完成。性成熟在16個月大時實現,但幼崽要到三歲時才能達到成年體型和體重。
出生後,新生幼崽會被母親舔乾淨,然後爬到母親的背上,靠在她的背腺上休息。這被認為有助於幼崽識別母親,並使幼崽保持溫暖,避免被其他成年個體干擾。雌性有三對乳頭,一對位於胸部,兩對位於腹股溝,所有乳頭都用於哺乳。哺乳可能在洞穴內或岩石上進行,通常在出生後的頭幾天內每隔大約1.5小時進行一次。關於該物種的父性護理沒有相關信息。
壽命
關於岩蹄兔的平均壽命信息較少,但有證據表明它們在野外可以活到12歲。
下級分類
中文名 | 學名 | 英文名 |
|---|---|---|
開普岩蹄兔 | Procavia capensis capensis | Cape Rock Hyrax |
東方岩蹄兔 | Procavia capensis johnstoni | Eastern Rock Hyrax |
考科維爾德岩蹄兔 | Procavia capensis welwitschii | Kaokoveld Rock Hyrax |
東北岩蹄兔 | Procavia capensis habessinicus | Northeastern Rock Hyrax |
西部岩蹄兔 | Procavia capensis ruficeps | Western Rock Hyrax |
/ | Procavia capensis syriaca | / |
保護現狀
保護級別
列入《世界自然保護聯盟瀕危物種紅色名錄》(IUCN 2014年 ver 3.1)——無危(LC)。
種群現狀
由於其分布廣泛、棲息地類型豐富、推測種群數量龐大、在眾多大型保護區中都有分布,且不太可能快速下降到足以被列入更受威脅的類別,因此被列為無危。在非洲和阿拉伯半島的乾旱岩質地帶廣泛分布且數量豐富。在某些地區,如辛巴威的馬托波斯和坦尚尼亞的塞倫蓋蒂(在那裡它們已被深入研究),其地方種群數量波動極為劇烈(Hoeck和Bloomer, 2013)。在肯亞山,它們被視為最顯眼的哺乳動物之一,平均密度估計為每平方公里20至100隻(Young和Evans, 1993)。
該物種沒有重大威脅。然而,它在局部地區被獵殺,可能已在一些較小的地點被消滅。在以色列,該物種受到法律保護,且天敵較少,其數量在耕種區和定居點有所增加,導致農作物和花園受損,需要採取有效的控制措施(例如,電網、捕殺)。
主要價值
岩蹄兔群體會在指定的區域排泄和排便,這些區域被稱為廁所。隨著時間的推移和更多物質的積累,這些物質最終會凝結成一個大的粘性固體。這種物質已被用於多種套用,包括一種名為“hyraceum”的藥物,用於治療癲癇、抽搐以及一些女性特有的疾病。岩蹄兔在其地理分布範圍內被獵殺以獲取其肉。
