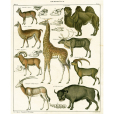
偶蹄目(學名:Artiodactyla)是脊索動物門哺乳綱中的一目,由中到大型的有蹄動物組成。偶蹄目動物的四肢均具偶數的趾,其大小近乎相等,圍繞由高度發達的第三和第四趾構成的主軸排列,並由這兩趾之上的肢軸支撐身體;第二和第五趾退化,小而朝後;一些種在額骨上生長洞角或鹿角,犬齒在大多數長角的種中退化,而在無角的種中則高度發達;具有瞼腺或其他外分泌腺是本目的共同特徵;骨骼特徵包括踝部的距骨具有兩個滑輪形的表面,具有的彈性韌帶使其行走靈活快速。現代分子學分析偶蹄類與鯨類親緣很近,因而有些分類系統把它們與鯨類合併到同一目(鯨蹄目)中。
偶蹄目廣泛分布於除澳洲、南極州外的世界各地。儘管大多數偶蹄類動物生活在相對開闊的棲息地,但它們可以在所有棲息地類型中找到,包括一些水生系統。偶蹄目為陸棲獸類,多數群居,除了少數為雜食性以外,多為植食性,奔跑迅速,營社會性生活。
偶蹄目可能起源於一種早已滅絕的古老有蹄類——踝節類,最早的偶蹄動物發現在早始新世。在始新世早期之後的歲月里,偶蹄動物分化出了分為古齒亞目、彎齒亞目、豬亞目、駢足亞目和反芻亞目五大類群的種類繁多的龐大家族。偶蹄目動物除肉可食用外,有些種類還是名貴的藥材,毛皮是製革及皮衣的佳品;亦可飼養於公園供觀賞,有的種類還可馴後供座乘及馱物品等。多數已列為保護動物,應加強保護。336種列入《世界自然保護聯盟瀕危物種紅色名錄》(IUCN)。
基本介紹
物種學史,命名,演化,形態特徵,體型,皮毛,胃部,棲息環境,分布範圍,世界,中國,生活習性,集群,防禦,遷徙,溝通,食性,天敵,反芻,生長繁殖,繁殖方式,壽命,下級分類,近種區別,保護現狀,保護級別,種群現狀,主要價值,生態價值,經濟價值,食用價值,其他價值,危害與防治,
物種學史
命名
偶蹄目由19世紀英國生物學家理察·歐文(Richard Owen)在1848年命名,“Artiodactyla”來自古希臘文ἄρτιος(ártios,意為“偶數”)和δάκτυλος(dáktylos,意為“手指,腳趾”)。
偶蹄目
演化
現生的偶蹄類包括豬形類、胼足類(駱駝),反芻類、以及河馬,其中河馬被認為和鯨的關係最近。現生的偶蹄類有240種,以不同的牙齒形態和食性,特殊的消化系統,不同的體型大小和運動方式,適應於廣闊的生境。所有的偶蹄類,包括早期的鯨類化石,都以雙滑車距骨為特徵,這一特徵也成為構成鯨-偶蹄類支系的直接證據。
最早的偶蹄類diacodexeids可能起源於古新世的踝節類Chriacus,在最早始新世幾乎同時出現在北方大陸,隨後在北美和歐洲都進入了快速輻射期;北美始新世早期偶蹄類主要以homacodontids為主,而歐洲的以dichobunids為主;由於歐洲在始新世主要由島嶼構成,和亞洲和北美分別以圖爾蓋海峽和挪威海相隔,動物群組成都具有顯著的地域性特色,包括稍晚出現的僅限於歐洲分布的偶蹄類的7個科。亞洲早期偶蹄類的材料較少,僅在中國江蘇上黃動物群和緬甸的邦塘動物群發現有較豐富的中-晚始新世偶蹄類化石;即使在以化石豐富著稱的內蒙古二連盆地,在長達100多年的研究歷史中,在古近紀也僅有6屬9種的偶蹄類化石報導,且均為體型中等到大型的類群。由於早期偶蹄類化石在不同大陸的多樣性和研究程度的差異,尤其在亞洲的缺乏,使得對一些重要類群的起源和擴散尚存很多爭議,這無疑也增加了對亞洲早期偶蹄類研究的難度。
偶蹄類可能起源於一種早已滅絕的古老有蹄類——踝節類,最早的偶蹄類發現在早始新世。此後,它們分化成包括豬亞目、駢足亞目和反芻亞目三大類群的龐大家族。
巨豬類從晚始新世一直生存到中新世。它們的樣子看起來像豬,但側趾退化,蹄子只有兩趾。中新世早期的巨豬類發展到了野牛般大小。
石炭獸類是另一類古老的豬形動物,生活在有水的環境,頭骨和牙齒與河馬相似。
豬類在進化過程中頭骨尤其是面部伸長,吻部突出,犬齒增大、變尖並向外歪曲,臼齒齒冠出現複雜的釉質褶皺,保留4趾。它們通常棲息在森林裡,挖掘地下的各種植物根莖為食。豬屬的最早地史記錄是中新世,家豬由野豬馴化而來,中國最早的家豬發現在7000年前的浙江河姆渡遺址中。
西貒類在早漸新世起源於北美,適於奔跑,側趾退化只有化石上的痕跡。更新世時進入南美並發展成現代的西貒。
河馬類可能在上新世晚期起源於石炭獸類,更新世曾經廣泛分布於舊大陸,現在只生活在非洲熱帶地區的河流湖沼地帶。
新獸類是從晚始新世到漸新世生存在歐洲的高度特化的豬形類,體形大小、身體結構和生活習性都像兔子。
岳齒獸類是晚始新世至上新世生存在北美大陸的一支豬形類。從始新世的原岳齒獸發展到漸新世的真岳齒獸,都是綿羊似的動物,成群地遊蕩在廣闊的原野上。但是,漸新世的一種岳齒獸類--郊豬竟然學著爬樹。
反芻亞目是偶蹄類家族中最繁盛的類群,包括鼷鹿類和有角類。
鼷鹿類起源於亞洲,如中國的古鼷鹿、脊齒鼷鹿以及北美的異鼷鹿等。經過漸新世,大部分鼷鹿類都滅絕了,僅有個別殘存類群延續到現代,分布僅限於亞洲南部和非洲的熱帶森林裡,如東方鼷鹿。
有角類是在始新世晚期從鼷鹿類中分化出來的進步反芻類,最終成為地球陸地生態系統中最成功、最具優勢的食草動物。
這些進步反芻類的一個重要特點就是頭上長出各種各樣的角。真正的鹿類出現在漸新世。中新世時,從鹿類中分化出長頸鹿類。有的學者考證長頸鹿就是古代的麒麟,儘管它的脖子很長,但和所有哺乳動物一樣,都是由7個頸椎組成。最早的牛類也在中新世分化出來,由於適應乾燥氣候,習慣地球上日益發展的革本植物和大面積草原群落,它們在上新世演化成為一個龐大的類群,並一直成功地延續至今。牛類也叫洞角類,與鹿類不同,它的骨質的角的外面,還包裹了一個角質的外套。現代活躍於世界各地的各種叉角羚羊、綿羊、山羊、麝牛、羚羊和牛等都屬於牛類。各種鹿類和牛類頭上那些多姿多彩的犄角成為它們生存競爭,尤其是雄性進行生殖競爭時的強大武器。
演化
形態特徵
體型
偶蹄類動物在外貌上表現出很大的變化。體重從河馬的4000千克到較小的鼷鹿(Tragulus javanicus)的2千克不等。身高從長頸鹿的5米到鼷鹿的23厘米不等。大多數偶蹄類動物的眼睛呈橫向定位,通常有長睫毛。它們通常有旋轉的耳朵,耳朵是圓形的或尖的,相對於頭骨的大小來說相對較大。大多數偶蹄類動物也有細長而有力的腿。許多家庭都有角、鹿角或象牙。角總是由骨頭或骨芯組成,在許多家庭中很常見,並且通常起源於額葉,額葉通常比頂骨大。與角類似,鹿角從額葉的基部長出,完全是骨質的。然而,與角不同的是,鹿角是落葉的,在繁殖季節使用。角和鹿角通常用於儀式化的社互動動,例如物種內的雄性競爭。偶蹄目除豬、駝和鹿科某些種類外,頭上均具一對從額骨長出的骨質角,鹿類的角為實角,有分支,並定期脫落;牛類的角為洞角,外有角鞘,內有骨髓,無分支,終生不脫換。
偶蹄類
偶蹄目除個別種類外,皆為大、中型有蹄獸類。四肢具雙數指(趾),對稱排列,每一腳上一般都有2或4個大小几乎相等的腳趾,指(趾)端具蹄。身體主要著力於第三和第四趾上。第二趾和第五趾比較小或已消失。第一趾在一些早期豬形類的前腳上還保存著,距骨有兩個滑車;股骨沒有第三轉子。前臼齒和臼齒大而發達,犬齒多退化。僅下門齒髮達,上門齒小或退化以至消失,僅以硬皮上齶咬合取食。前臼齒和臼齒在構造上均屬高冠齒。具有適於研磨的咀嚼面,例如豬具有隆起的小瘤,稱丘齒型;反芻類的牛、羊和鹿的頰齒具有前後擴展新月形的月型齒。多數具角。
皮毛
偶蹄類動物的皮毛通常由護毛和皮毛組成,它們共同有助於控制熱交換。底毛往往短而細,可以有效地捕獲熱量。護毛比底毛更長、更粗壯,可作為抵禦風、雨和雪的屏障。皮毛顏色從黑色到白色不等,並帶有許多深淺不一的棕色。皮毛內的顏色圖案因斑點而異,而大多數幼獸的皮毛與成獸明顯不同。在某些物種中,雄性有一條長毛腹脊,稱為褶皺或贅肉,雄性毛色通常與年齡或社會地位有關。生活在溫帶和北極地區的物種會季節性地脫掉冬毛。
白尾鹿
胃部
偶蹄目的胃有2種,一種是反芻胃(如駱駝、鼷鹿、鹿、牛類),由3-4室組成(瘤胃、網胃、瓣胃和皺胃);另一種為非反芻胃(如河馬、野豬),由1-3室組成。乳腺多位於鼠蹊部至腹部。
棲息環境
偶蹄目動物非常多樣化且分布於全球。因此,它們棲息在廣泛的棲息地類型中,可以在任何有足夠草料的地方找到。儘管偶蹄類動物分布在沙漠、熱帶森林和苔原,但首選的棲息地類型分為四大類,這與覓食豐度和捕食者防禦有關。開闊的草原提供了豐富的草料,同時允許及早發現接近的捕食者。陡峭懸崖附近的草原或草地提供草料,同時在相鄰的岩石壁架和陡峭地形中提供安全保護,免受潛在捕食者的侵害。森林和灌木叢提供了豐富的草料,同時在茂密的植被中提供了對潛在捕食者的掩護。最後,許多物種棲息在開闊地區和森林之間的交錯帶上。雖然開闊區域提供了豐富的草料,但相鄰的森林為潛在的捕食者提供了密集的掩護。偶蹄類動物的棲息地利用模式通常與體型和分類學有關,中小型偶蹄類動物主要生活在植被高大茂密的棲息地。大多數山羊和綿羊物種 (Caprinae) 都生活在岩石懸崖附近的開闊棲息地,它們專門用於在不平坦的地形中航行。
美洲羚羊
分布範圍
世界
偶蹄類動物幾乎分布在世界各地,原產於除南極洲和澳大利亞以外的所有大陸。
偶蹄目分布圖
中國
在中國廣泛分布於大部分地區,沿中國第一、二級階梯交界處,即在崑崙山脈一柴達木盆地和橫斷山一川西高原及岷山秦嶺等地區種類較多,主要集中在西藏東南部、雲南西北部及邛峽山、阿爾金山和祁連山等地區,而在種群密集的華北平原、東北平原很少。
生活習性
集群
偶蹄目動物屬陸棲獸類,多營群居生活。四肢強健,善於奔跑。雖然有些偶蹄目動物是獨居的,但大多數是群居的。人們認為,生活在大群體中可以通過減少人均掃描捕食者的時間來增加人均飼料攝入量。因此,群居動物通過增加捕食者檢測和增加飼料攝入量而獲益。然而,隨著群體規模的增加,種內競爭的程度也會增加。畜群通常是性別隔離的,這可能有助於減少對食物的兩性資源競爭。在體型二態物種中,有證據表明,胃腸道長度的性別差異可能導致不同的飲食需求,進一步減少了雄性和雌性的飲食重疊。
加拿大馬鹿
防禦
偶蹄目動物有許多不同的方式來應對同種動物和捕食者的遭遇。為了避免打架,一些物種會使用展示,其中可能包括姿勢和發聲。姿勢通常包含身體屬性,如皮毛、角、鹿角或象牙的顏色。一些偶蹄目動物通過側面展示或豎毛(即豎起脖子或背部的毛髮)使自己在對手面前顯得更大。雖然大多數展示用於避免身體對抗,但一些偶蹄目動物使用威脅展示來傳達戰鬥的欲望。例如,豬只咬緊牙關,表達對戰鬥的渴望。當身體對抗不可避免時,角、鹿角和牙齒是偶蹄目動物的重要防禦工具。通常,偶蹄目動物在與同種競爭配偶或領地時會使用這些武器,而不是保護自己或幼崽免受捕食者的攻擊。
騾鹿加州亞種
遷徙
與其他吸熱動物類似,許多偶蹄目物種根據近端線索(如光周期)遷徙。這些近端線索可以作為各種最終因素的指標,例如季節的變化,這可能會影響害蟲、捕食者和飼料的豐度。雖然移民的成本可能很高,但好處通常包括提高種群存活率和增強生殖健康。偶蹄目遷徙的兩個研究最好的案例包括貧瘠的地面馴鹿和塞倫蓋蒂角馬,它們的年遷徙距離分別超過500千米和1700千米。不幸的是,許多偶蹄目物種的季節性遷徙是由光周期引起的,而植物生長季節是由溫度引起的。如果特定物種資源的生長季節與遷徙的開始不完全匹配,植物物候的變化可能會對遷徙動物的長期生存產生不利影響。例如,西格陵蘭島春季平均氣溫的升高似乎導致馴鹿遷徙信號與重要飼料植物春季生長季節的開始不匹配。有證據表明,馴鹿遷徙的速度與飼料植物沒有可比性,因此,西格陵蘭馴鹿的小牛產量下降了四倍。

南非劍羚
溝通
許多偶蹄目物種使用腺體分泌物與同種動物交流。信息素是由上皮腺產生的,上皮腺通常位於身體的兩側,一些偶蹄目動物用足腺標記足跡或臥鋪區域。一般來說,偶蹄目動物使用信息素來傳達危險、自己的身體狀態、建立自己的存在或吸引潛在的伴侶。例如,鹿科的一些成員將鹿角耙在林下植被上,讓同種動物知道它們的存在。許多偶蹄目動物使用尿液或糞便來標記領地,參與交配儀式,並可能將排泄行為納入身體展示中。例如,當遇到同種競爭對手時,駱駝會排泄糞便和尿液,一些種類的鹿會噴灑尿液以吸引配偶。
原駝
許多偶蹄目動物吸引配偶,保衛領土,建立和捍衛等級地位,並通過創造各種聲音或發聲向同種動物傳送信息。例如,雄性霍加狓會發出安靜的呻吟來吸引雌性,而河馬會發出咆哮聲來回應同種挑戰者。在交配季節,美洲野牛會發出喉音(即風箱聲),向雌性表明交配質量和身體狀況。同種之間的交流在群居物種中尤為重要。
麝牛
食性
除少數為雜食性外,其餘均以植物性食物為食。除了豬亞科,偶蹄目是專性食草動物。典型的飼料包括草、葉子、水果、花、樹枝、水生植被、根和堅果。在豬科和西貒科中,飲食也可能包括昆蟲幼蟲、幼蟲和卵。雖然是專性食草動物,但一些種類的偶蹄目動物是機會性進食者(如鹿和長頸鹿),偶爾會吃腐肉。低質量飲食(即高纖維和低蛋白質)的偶蹄目動物被迫通過攝入大量飼料、咀嚼反芻物(即反芻)和將大部分時間用於進食來彌補。此外,由於哺乳動物不具備消化纖維素和木質素所需的酶,大多數偶蹄目動物依靠細菌發酵來分解這些化合物。
海氏矮海豚
除了真胃或皺胃外,所有偶蹄目動物都至少有一個額外的腔室或假胃,細菌在其中發酵。在反芻亞目中,對劣質食物的消化是通過四種不同的途徑進行的。首先,胃發酵提取脂質、蛋白質和碳水化合物,然後通過腸道吸收並分布在全身。其次,未消化的大食物顆粒形成一團或一團反芻物,被反芻並重新咀嚼,以幫助分解攝入的植物物質的細胞壁。第三,通過細菌發酵消化纖維素會產生高氮微生物,這些微生物偶爾會沖入腸道,隨後被宿主消化。這些高氮微生物是許多偶蹄目動物,尤其是反芻動物的重要蛋白質來源。最後,反芻動物可以在胃裡儲存大量的飼料供以後消化。所有反芻動物都會反芻,有三到四個腔室的胃,並支持分解纖維素的微生物。
西敏羱羊
在偶蹄目中,只有豬形亞目被認為是雜食性的。然而,許多物種偏離了這一廣泛的分類,被認為是專門的食草動物。例如,毛鹿豚(Babyrousa babyrussa)、大林豬(Hylochoerus meinertzhageni)和荒漠疣豬(Phacochoerus aethiopicus)都被認為是專門的食草動物。一般來說,豬頭和豬嘴很大,用來紮根覓食。豬科是現存三個豬形亞目中最雜食的一種,只要有機會,就會殺死和吃掉小動物,包括齧齒動物、蛇、鳥蛋和雛鳥。儘管西貒科被認為是雜食性的,但有證據表明,西貒科比豬科更依賴植物。與豬科只相似,大多數西貒科只都有大頭和可移動的鼻子,在覓食時使用。河馬科科的兩個物種,Hippopotamous amphibius和倭河馬(Hexaprotodon liberiensis),是比任何一個姐妹科更專業的食草動物。河馬個體主要以草為食,而倭河馬也以樹葉和果實為食。豬科和西貒科有一個假胃,河馬科(Hippotamidae)有兩個假胃。
大林豬
胼足亞目(Tylopoda)亞目中的物種廣泛專門用於乾燥乾旱的棲息地。因此,它們可以很容易地消化其他偶蹄類動物無法忍受的高鹽含量植物(即鹽生植物)。駱駝科動物是反芻的食草動物,可以在植被稀疏的棲息地中生存。它們有兩個假胃和一個短而簡單的盲腸。
天敵
人類獵殺偶蹄類動物是為了它們的肉和皮,以及作為戰利品。在野外,貓科動物和犬科動物是偶蹄類動物的主要捕食者。除了人類、貓科動物和犬科動物外,大型偶蹄類動物幾乎沒有捕食者。然而,幼崽非常脆弱,經常成為小型捕食者的目標。由於無法逃離圍欄,牲畜很容易被捕食,並且在稀缺時期經常成為捕食者的目標。
反芻
食草獸被食肉獸所食,常常是在它們食草的時候,因為在食草,放鬆了警惕性。牛、羊和鹿等食草偶蹄動物,在進化過程中用逐漸完善起來的“反芻胄”將食物不經咀嚼儘快吃到胄里,以後再慢慢咀嚼,這樣就減少了被敵害所吃的可能性,也是對抗強敵乏的一種方法。反芻就是把攝食過程分成兩步來進行:先在短短的時間裡迅速吞下大量食物,在嘴裡只是“粗加工”,然後它轉移到安全地帶,讓胃裡的食物再返回嘴裡充分咀嚼(即反芻),再下咽消化。這樣就減少了被食肉獸襲擊的機會。長此以往,加上繁殖等方面的先進性,它們的家族種類眾多,是現代占優勢的有蹄動物。
牛的反芻胃
生長繁殖
繁殖方式
- 交配
大多數偶蹄類動物是一夫多妻制的,儘管少數物種是季節性的一夫一妻制(例如,藍色小羚羊)。偶蹄類動物實行兩種形式的一夫多妻制,女性防禦一夫多妻制和資源防禦一夫多妻制。女性防禦一夫多妻制發生在雄性在發情期時與單個雌配並保護她。雄性還可以保護幾隻雌性(即後宮)免受其他雄性的影響,在發情期間與每個個體求愛和交配。雄性還可能捍衛吸引配偶的特定棲息地,因為它們提供了豐富的資源或免受捕食者侵害。這被稱為資源防禦一夫多妻制,發生在叉角羚和許多非洲羚羊物種中。
小鹿瞪羚
- 產子
偶蹄類動物通常每年只繁殖一次,但有些可能會多次繁殖。它們往往是多發情的,妊娠期為4-15.5個月。除了一窩可生多達 12隻幼崽的豬科外,偶蹄類動物每年會產下一隻,有時是兩隻幼崽,體重在0.5-80千克之間,並在6-60個月之間性成熟。分娩的時間通常與季節性植物生長相吻合。因此,溫帶和北極地區的大多數物種在早春分娩,而熱帶物種在雨季開始時分娩。分娩的時間對母親來說尤為重要,因為母親需要大量高質量的植物來抵消哺乳產生的生理成本。此外,豐富的優質植被有助於幼崽更快地生長,從而降低捕食風險。
長頸鹿
- 哺育
所有偶蹄類動物都會生下性早熟的幼崽,能夠在出生後幾個小時內走路。一些物種的幼崽甚至能夠在出生後2-3小時內奔跑。雌性是主要的照顧者和護士,直到幼崽斷奶,即出生後2-12個月。根據母體護理,偶蹄類可以分為兩個不同的類別:隱藏者和追隨者。“躲藏的幼崽”往往有偽裝的外套,當它們的母親白天外出覓食時,它們會隱藏起來。在離開之前,躲藏的母親會把它們的幼崽帶到一個僻靜的地方,幼崽會選擇一個躲藏的地方。躲藏的母親會定期全天返回餵養和清潔幼崽。當躲藏的幼崽變得更有能力逃避潛在的捕食者時,它們開始陪伴母親進行覓食比賽,這在追隨者物種出生後立即發生。躲藏者往往生活在較小的群體中,為幼崽提供足夠的庇護所。追隨者往往是體型較大的物種,它們生活在開闊的棲息地,幾乎沒有幼崽的庇護所。兩者都可能是反捕食者防禦的形式,與幼鳥的大小和在當地環境中的暴露量有關。後代在斷奶後經常與母親在一起數月甚至數年,在某些性別分離的牛科和鹿科物種中,即使在達到性成熟後,女兒也會留在她們的出生群中。雌性馬鹿是母系的,可能會將社會地位和部分活動範圍轉移給它們的女兒。
西方狍
壽命
偶蹄類動物的壽命從8-40年不等。大量研究表明,成年雄性的生存率比雌性的生存率低,而且隨著時間的推移變化更大。偶蹄類動物的性別偏倚死亡率最常歸因於性選擇,證據表明大小偏倚的死亡率與性二態性程度呈正相關,性別越大,死亡率越高(例外情況見高山野山羊和摩弗倫山羊)。死亡率與體型二態性之間的相關性被認為是一夫多妻制增加的結果,導致雌雄競爭加劇。還有人假設,在性大小的二態性物種中,較大的性別具有更高的絕對能量需求,因此更容易挨餓。研究還表明,一些偶蹄類物種的衰老誘導死亡率從8歲左右開始,無論性別如何。
偶蹄目
下級分類
亞目 | 下目 | 小目 | 總科 | 科 |
|---|---|---|---|---|
Ruminantia | / | / | / | 叉角羚科Antilocapridae |
/ | / | / | 牛科Bovidae | |
/ | / | / | 鹿科Cervidae | |
/ | / | / | 長頸鹿科Giraffidae | |
/ | / | / | 麝科Moschidae | |
/ | / | / | 鼷鹿科Tragulidae | |
Suina | / | / | / | 豬科Suidae |
/ | / | / | 西貒科Tayassuidae | |
Tylopoda | / | / | / | 駱駝科Camelidae |
河馬形亞目 Whippomorpha | 河馬下目 Ancodonta | / | / | 河馬科Hippopotamidae |
Cetacea | 鬚鯨小目 Mysticeti | / | 露脊鯨科Balaenidae | |
/ | 鬚鯨科Balaenopteridae | |||
/ | 灰鯨科Eschrichtiidae | |||
/ | 小露脊鯨科Neobalaenidae | |||
齒鯨小目 Odontoceti | 海豚總科Delphinoidea | 海豚科Delphinidae | ||
一角鯨科Monodontidae | ||||
鼠海豚科Phocoenidae | ||||
亞河豚總科Inioidea | 亞河豚科Iniidae | |||
拉普拉塔河河豚科Pontoporiidae | ||||
白鱀豚總科Lipotoidea | 白暨豚科Lipotidae | |||
抹香鯨總科Physeteroidea | 小抹香鯨科Kogiidae | |||
抹香鯨科Physeteridae | ||||
恆河豚總科Platanistoidea | 河豚科Platanistidae | |||
喙鯨總科Ziphioidea | 喙鯨科Ziphiidae |

偶蹄目內部的分化關係
近種區別
偶蹄動物包括現代大多數有蹄動物,特點是腳趾為雙數,第三和第四趾特別發達,趾端有蹄,第二和第五趾很小,第一趾退化,上領門衛有消失的趨向或全部消失:而奇蹄動物包括少數大型的食草性仃蹄動物,腳趾為單數,第三趾特別發達,其餘各趾或不發達(犀牛、貘),或完全退化(馬),上下門齒均存在,適於切草。
保護現狀
保護級別
336種列入《世界自然保護聯盟瀕危物種紅色名錄》(IUCN);其中,8種為滅絕(EX),1種為野外滅絕(EW),16種為極危(CR),49種為瀕危(EN),57種為易危(VU),39種為近危(NT),141種為無危(LC),25種為數據缺乏(DD)。
列入《瀕危野生動植物種國際貿易公約附錄Ⅰ、附錄Ⅱ和附錄Ⅲ》(2023版),具體詳見下表:
附錄Ⅰ | 附錄Ⅱ | 附錄Ⅲ |
|---|---|---|
叉角羚科Antilocapridae | ||
叉角羚Antilocapra americana (僅墨西哥種群;其他所有種群都未被列入附錄) | ||
牛科Bovidae | ||
旋角羚 Addax nasomaculatus 印度野牛Bos gaurus{除其家養型,即家養大額牛Bos frontalis不受公約條款管制} 野氂牛Bos mutus {除其家養型,即家氂牛Bos grunniens不受公約條款管制} 高棉野牛Bos sauveli 西里伯斯水牛Bubalusdepressicornis 民都洛水牛Bubalus mindorensis 夸氏水牛Bubalus quarlesi 捻角山羊Capra falconeri 中華鬣羚Capricornismilneedwardsii 紅鬣羚Capricornis rubidus 蘇門答臘鬣羚Capricornis sumatraensis 喜馬拉雅鬣羚Capricornis thar 詹氏小羚羊Cephalophus jentinki 居氏羚Gazella cuvieri 細角羚Gazella leptoceros 大貂羚安哥拉亞種Hippotragus niger variani 赤斑羚Naemorhedus baileyi 長尾斑羚Naemorhedus caudatus 喜馬拉雅斑羚Naemorhedus goral 中華斑羚Naemorhedus griseus 蒼羚Nanger dama 彎角大羚羊Oryx dammah 阿拉伯大羚羊Oryx leucoryx 安納托利亞綿盤羊Ovis gmelini(僅賽普勒斯種群;其他種群未被列入附錄) 西藏盤羊Ovis hodgsoni 卡拉套盤羊Ovis nigrimontana 維氏綿盤羊Ovis vignei 藏羚Pantholops hodgsonii 安南錠角羚Pseudoryx nghetinhensis | 鬣羊Ammotragus lervia 扭角羚Budorcas taxicolor 高加索羱羊Capra caucasica 布氏小羚羊Cephalophus brookei 騮毛小羚羊Cephalophus dorsalis 奧氏小羚羊Cephalophus ogilbyi 黃背小羚羊Cephalophus silvicultor 斑背小羚羊Cephalophus zebra 白腿大羚羊指名亞種Damaliscuspygargus pygargus 驢羚Kobus leche 阿爾泰盤羊Ovis ammon 阿拉伯綿盤羊Ovis arabica 塔吉克綿盤羊Ovis bochariensis 加拿大盤羊Ovis canadensis(僅墨西哥種群;其他種群未被列入附錄) 哈薩克盤羊Ovis collium 阿富汗綿盤羊Ovis cycloceros 戈壁盤羊Ovis darwini 雅布賴盤羊Ovis jubata 天山盤羊Ovis karelini 帕米爾盤羊Ovis polii 旁遮普綿盤羊Ovis punjabiensis 烏茲別克盤羊Ovis severtzovi 褐麂羚Philantomba maxwelli 藍小羚羊Philantomba monticola 岩羚羊阿布魯左亞種Rupicaprapyrenaica ornata 北方高鼻羚羊Saiga borealis 高鼻羚羊Saiga tatarica | 印度羚Antilope cervicapra(尼泊爾、巴基斯坦) 大藍羚Boselaphus tragocamelus(巴基斯坦) 印度水牛Bubalus arnee {除其家養型,即亞洲水牛Bubalus bubalis不受公約條款管制}(尼泊爾) 野山羊Capra hircus aegagrus(巴基斯坦) 北山羊Capra sibirica(巴基斯坦) 印度瞪羚Gazella bennettii(巴基斯坦) 鹿羚Gazella dorcas(阿爾及利亞、突尼西亞) 岩羊Pseudois nayaur(巴基斯坦) 四角羚Tetracerus quadricornis(尼泊爾) |
駱駝科Camelidae | ||
小羊駝Vicugna vicugna (除被列入附錄Ⅱ的下述種群:阿根廷Catamarca省、Jujuy省和Salta省種群,及Catamarca省、Jujuy省、LaRioja省、Salta省和San Juan省的半圈養種群、智利Arica and Parinacota區和Tarapacá區種群、厄瓜多所有種群、秘魯所有種群、玻利維亞所有種群) | 原駝Lama guanicoe 小羊駝Vicugna vicugna(阿根廷Catamarca省、Jujuy省和Salta省種群,及Catamarca省、Ju juy省、LaRioja省、Salta省和San Juan省的半圈養種群、智利Arica and Parinacota區和Tarapacá區種群、厄瓜多所有種群、秘魯所有種群、玻利維亞所有種群;其他所有種群都被列入附錄Ⅰ) | |
鹿科Cervidae | ||
卡島豚鹿Axis calamianensis 巴島豚鹿Axis kuhlii 豚鹿印支亞種Axis porcinusannamiticus 南美澤鹿Blastocerus dichotomus 馬鹿克什米爾亞種Cervus elaphushanglu 黇鹿波斯亞種Dama damamesopotamica | 馬鹿大夏亞種Cervus elaphusbactrianus 北普度鹿Pudu mephistophiles | 豚鹿Axis porcinus(除被列入附錄Ⅰ的亞種)(巴基斯坦) 馬鹿柏柏爾亞種Cervus elaphusbarbarus(阿爾及利亞、突尼西亞) 赤短角鹿哥斯大黎加亞種Mazamatemama cerasina(瓜地馬拉) 白尾鹿瑪雅亞種Odocoileusvirginianus mayensis(瓜地馬拉) |
種群現狀
近一半的偶蹄類動物都受到滅絕的威脅,經濟發展緩慢的地區滅絕的風險會增加。人類在沒有監管的情況下獵殺了許多物種,幾乎滅絕。偶蹄類動物面臨的最大威脅之一是棲息地喪失。例如,由於排水和耕作,麋鹿的原生沼澤棲息地在3500年前大部分被破壞。幸運的是,大群麋鹿生活在其原生地的眾多公園和保護區中。在某些情況下,增加當地種群增長的保護工作非常有效,以至於種群控制變得必要(例如:長頸鹿)。除了棲息地喪失之外,氣候變化還開始縮小物種範圍,並迫使許多物種向極地遷移。例如,駝鹿 (Alces alces) 是北方生態系統的重要組成部分,是出了名的不耐熱,位於美國中北部其環極分布的南部邊緣。自1980年代中後期以來,對該物種的種群研究表明,隨著溫度的升高,其最南端分布的種群數量急劇下降。
主要價值
生態價值
偶蹄類動物在其所居住的生態系統的結構和功能中起著不可或缺的作用,許多物種已被證明可以改變當地植物群落的密度和組成。例如,在皇家島國家公園,駝鹿 (Alces alces) 已被證明可以改變覓食水生植物群落的密度和組成,因此,通過攝入水生大型植物從水生棲息地轉移到陸地棲息地的糞氮增加了夏季核心區域的陸地氮可用性。偶蹄類動物的覓食已被證明對植物演替有重大影響,並且在覓食地區植物多樣性更大。因此,偶蹄類植物的覓食可能會導致從一種植物群落類型轉變為另一種植物群落類型(例如硬木到針葉樹)。此外,偶蹄類動物適度的覓食可能會增加同種動物的棲息地適宜性。例如,被瀏覽的植物的凋落物分解得更快,從而增加了周圍植物群落的養分可用性。此外,尿液和糞便的營養輸入已被證明有助於周圍植物群落的莖生長更長和葉子更大,這在覓食比賽中是首選。最後,研究表明,大型偶蹄類胴體的分解會導致土壤常量營養素和葉片氮含量升高至少兩年。
經濟價值
從經濟上講,牛是世界上最重要的馴養動物。2001年,全球家偶蹄類動物的數量超過41億隻,其中31%以上是牛。美國是世界四大牛肉生產國之一,牛肉生產是該國第四大產業。除了肉類生產外,偶蹄類動物還用於它們的牛奶、毛皮、皮膚、骨頭和糞便,運動狩獵每年在北美和歐洲產生數百萬美元。然而,戰利品狩獵可以通過施加非自然的選擇壓力來減少觀賞,從而改變野生種群的進化動態。最後,偶蹄類動物在全球生態旅遊運動中發揮著重要作用,因為在其大部分原生棲息地都很容易觀察到各種有蹄類動物。
食用價值
人類及其祖先在其進化歷史的大部分時間裡都是以狩獵和採集為生。偶蹄類動物可能在這段時間的大部分時間裡都是重要的食物來源,並且仍然是人類飲食的重要組成部分。在72,000-42,000年前,人類開始穿衣服,其中可能包括許多偶蹄類物種的皮膚。在近東,大約10,000年前,山羊和綿羊被馴化以維持生計,隨後是牛(7,500年前)、豬(7,500年前)、美洲駝和羊駝(6,500年前)和駱駝(3,500年前)的馴化。為維持生計而馴化偶蹄類動物導致了人類歷史上最重要的文化變革之一,即從純粹的狩獵採集社會過渡到畜牧和農業社會。
其他價值
偶蹄目動物除肉可食用外,有些種類還是名貴的藥材,毛皮是製革及皮衣的佳品;亦可飼養於公園供觀賞,有的種類還可馴後供座乘及馱物品等。多數已列為保護動物,應加強保護。
沙漠大角羊
危害與防治
各種形式的人畜共患病原體在其生命或病毒周期的關鍵部分使用偶蹄類動物。例如,豬可以同時攜帶多種流感病毒株,這些毒株可以雜交並導致新的毒性流感毒株(例如H1N1)。此外,偶蹄類動物可以通過肉類、奶類或直接身體接觸將人畜共患疾病(例如瘋牛病)傳播給人類。偶蹄類動物還通過破壞和消耗農作物,成為中國國內偶蹄類種群(例如布魯氏菌病)的人畜共患疾病的潛在載體,並與牲畜爭奪資源,從而對各種形式的農業構成潛在威脅。
